イングランド南西部の新石器時代~青銅器時代の人口史
イングランド南西部の新石器時代~青銅器時代の人類遺骸のゲノムデータを報告した研究(Vuković et al., 2026)が公表されました。[]は本論文の参考文献の番号で、当ブログで過去に取り上げた研究のみを掲載しています。本論文は、イングランド南西部の12ヶ所の遺跡で発見された紀元前3800~紀元前1400年頃の30個体のゲノムデータを新たに報告し、既知のデータとともに分析しています。その結果、紀元前3000~紀元前2500年頃にかけて遺伝的祖先系統(祖先系譜、祖先成分、祖先構成、ancestry)の急激な変化が観察されました。一方で、この新たな遺伝的構成の人々は、遺伝的にも文化的にも明確なつながりが確認されていない、先住集団が築いた埋葬遺構を再利用していました。本論文は、遺伝と文化の関係が複雑であること(関連記事)を、改めて示しているように思います。
以下の略称は、DNA(deoxyribonucleic acid、デオキシリボ核酸)、mtDNA(mitochondrial DNA、ミトコンドリアDNA)、mtHg(mtDNA haplogroup、ミトコンドリアDNAハプログループ)、YHg(Y-chromosome DNA haplogroup、Y染色体DNAハプログループ)、SNP(Single Nucleotide Polymorphism、一塩基多型)、AADR(The Allen Ancient DNA Resource、アレン古代DNA情報源)、PCA(principal component analysis、主成分分析)、ANF(Anatolian Neolithic Farmer、アナトリア半島新石器時代農耕民)、WHG(Western Hunter-Gatherer、西方狩猟採集民)、m(metre、meter、メートル)、READ(Relationship Estimation from Ancient DNA、古代DNAの関係推定)です。本論文で取り上げられる主要な文化は、鐘状ビーカー(Bell Beaker 、鐘形杯、略してBB)文化、ヤムナヤ(Yamnaya)文化、縄目文土器(Corded Ware)文化、線形陶器(Linear Pottery、Linearbandkeramik、略してLBK)文化、コッツウォルド=セバーン(Cotswold-Severn)様式です。
本論文で取り上げられるイギリスの主要な遺跡と地域は、バーン・グラウンド(Burn Ground、略してbgd)、チェッドワース(Chedworth、略してche)、グロスターシャー(Gloucestershire)県のセールズ・ロット(Sale’s Lot、略してlot)、姉妹長形墓(Sisters Long Barrow、略してslb)、ドーセット(Dorset)州のカナダ・ファーム(Canada Farm、略してcfa)、ドーセット・カーサス(Dorset Cursus、略してcur)、ファー・ツリー・フィールド塚(Fir Tree Field Pond Barrow、略してdfb)、ファー・ツリー・フィールド周溝(Fir Tree Field Ring Ditch、略してdfr)、ハンドレー塚(Handley Barrow、略してhdw)、ノール・ヒル・ファーム(Knowle Hill Farm、略してkhf)、モンクトン・アップ・ウィンボーン(Monkton-up-Wimborne、略してmuw)、ウォー塚(Wor Barrow、略してwrb)です。本論文で取り上げられるイギリス以外の主要な遺跡と地域は、ドイツのシュトゥットガルト(Stuttgart)、ルクセンブルクのロシュブール(Loschbour)、です。
●要約
初期農耕共同体の拡大は紀元前4000年頃に初めてブリテン島に到達し、最終的には在来の採食民を置換もしくは吸収しました。その2000年後、鐘形杯文化と関連する別の移住の波が、再びブリテン島の遺伝的および社会文化的景観を変えました。イングランド南西部は先史時代の埋葬遺構が豊富で、その一部の年代は前期新石器時代以降となり、その多くは後に鐘形杯文化期や青銅器時代において再利用されました。イングランド南西部の12ヶ所の遺跡の紀元前3800~紀元前1400年頃の30個体のゲノムが分析され、紀元前3000~紀元前2500年頃の急激な遺伝的変化が特定されました。紀元前3100年頃以前の全個体遺伝的にヨーロッパ新石器時代農耕民と類似していたのに対して、紀元前2500年頃以後の個体は遺伝的にブリテン島の鐘形杯文化と関連する人々と類似していました。3ヶ所の遺跡では、青銅器時代の個体は、遺伝的に異なる新石器時代共同体によって1000年以上前に元々は構築された遺構に埋葬されていました。これらの遺構の元々の建造者および利用者の明確な文化的もしくは生物学的関連が欠如していた、この埋葬活動の第二の波は、侵入者もしくは後の集団による、自身をすでに確立した景観に定着させ、それ以前の埋葬地の象徴的権威に依拠する、試みを反映しているかもしれません。本研究は、新石器時代~青銅器時代の移行期にまたがる、ブリテン島南西部の、最初の体系的な地域的古代ゲノム横断調査を提供します。この地域は、考古学的痕跡は豊富ながら、以前には集団ゲノムの観点からは充分に研究されていませんでした。
●研究史
8000年前頃以降、大陸から地理的に切り離されていたブリテン諸島では、ヨーロッパ本土と比較して、異なる速度でヒトの移住と文化的変容がありました。人々の新たな集団がヨーロッパ大陸本土全域に農耕をもたらし[5]、この移住と変容はブリテン諸島にほぼ1000年遅れて到達しました[11]。この移行は栽培化された作物および家畜化された動物種や土器やとくに大規模な技師的遺構の構築に現れました。最古級で最も多く見られるのは細長い石もしくは土の塚で、紀元前四千年紀に築かれました。これらは一般的に集団埋葬の場所として使用されましたが、景観における規模と傑出性は別の重要性も示しており、領域の標識として機能した可能性が最も高そうです[15]。
これは、ヨーロッパ大陸全域における急速な変化ではなく、長く不均一な過程で、南東部から北部への数千年かけて侵攻しました。ブリテン島全体に浸透した、ブリテン島新石器時代と関連する文化的および遺伝的変化については、さらに2000年間を要しており[17]、「新石器時代農耕民」祖先系統(約75%)と「中石器時代採食民」祖先系統(約25%)の間の混合である遺伝的特性が生じました。ブリテン島における、栽培化および家畜化された資源への移行やその後の金属加工の到来は、ヨーロッパ本土と比較して相対的に遅くなり、それはヨーロッパの北西部周縁に位置していたことに起因する可能性が高そうです。
紀元前3000年頃、「ヤムナヤ」文化もしくは「土坑墓」文化と関連する遊牧民が、ポントス草原からヨーロッパへの移動を開始しました[18~22]。その後、在来新石器時代集団との混合が起き、しばしば、いわゆる縄目文土器と関連していました[19、20]。続いて、新たな文化的統合および表現が生じ、鐘形杯文化と命名され[23]、数世紀以内にブリテン島に到達しました。この移住の直後には、ポントス草原地帯関連祖先系統がブリテン諸島の人々の遺伝的組成の大きな割合を占めていました[23]。
選ばれた個体が、長形墓と呼ばれることが多い、共同埋葬構造物に安置された前期新石器時代の埋葬慣行は、紀元前3500年頃に使用が途絶え、あらゆる種類の埋葬が比較的稀な500年以上にわたる期間が続きました。この中断を経て、個人協調への移行がありましたが、再び選別的なやり方が明らかで、それは、発掘された埋葬の数が、全体的な人口の一部しか表していない可能性があるからです。単一の個体の埋葬に重点を置いた円形墓の新たな形態が現れましたが、そこが死者を埋葬する唯一の場所ではありませんでした。紀元前竿千年紀後半および紀元前二千年紀前半に繰り返された埋葬事例として、その時点ですでに1000年以上経過していたそれ以前の新石器時代の遺構に、追加の埋葬がありました。新石器時代に起源がある巨石埋葬記念建造物の継続的利用は、ヨーロッパ大陸全域で観察されましたが[20、30~32]、経時的な埋葬された個体間の関係はよく理解されていませんでした。
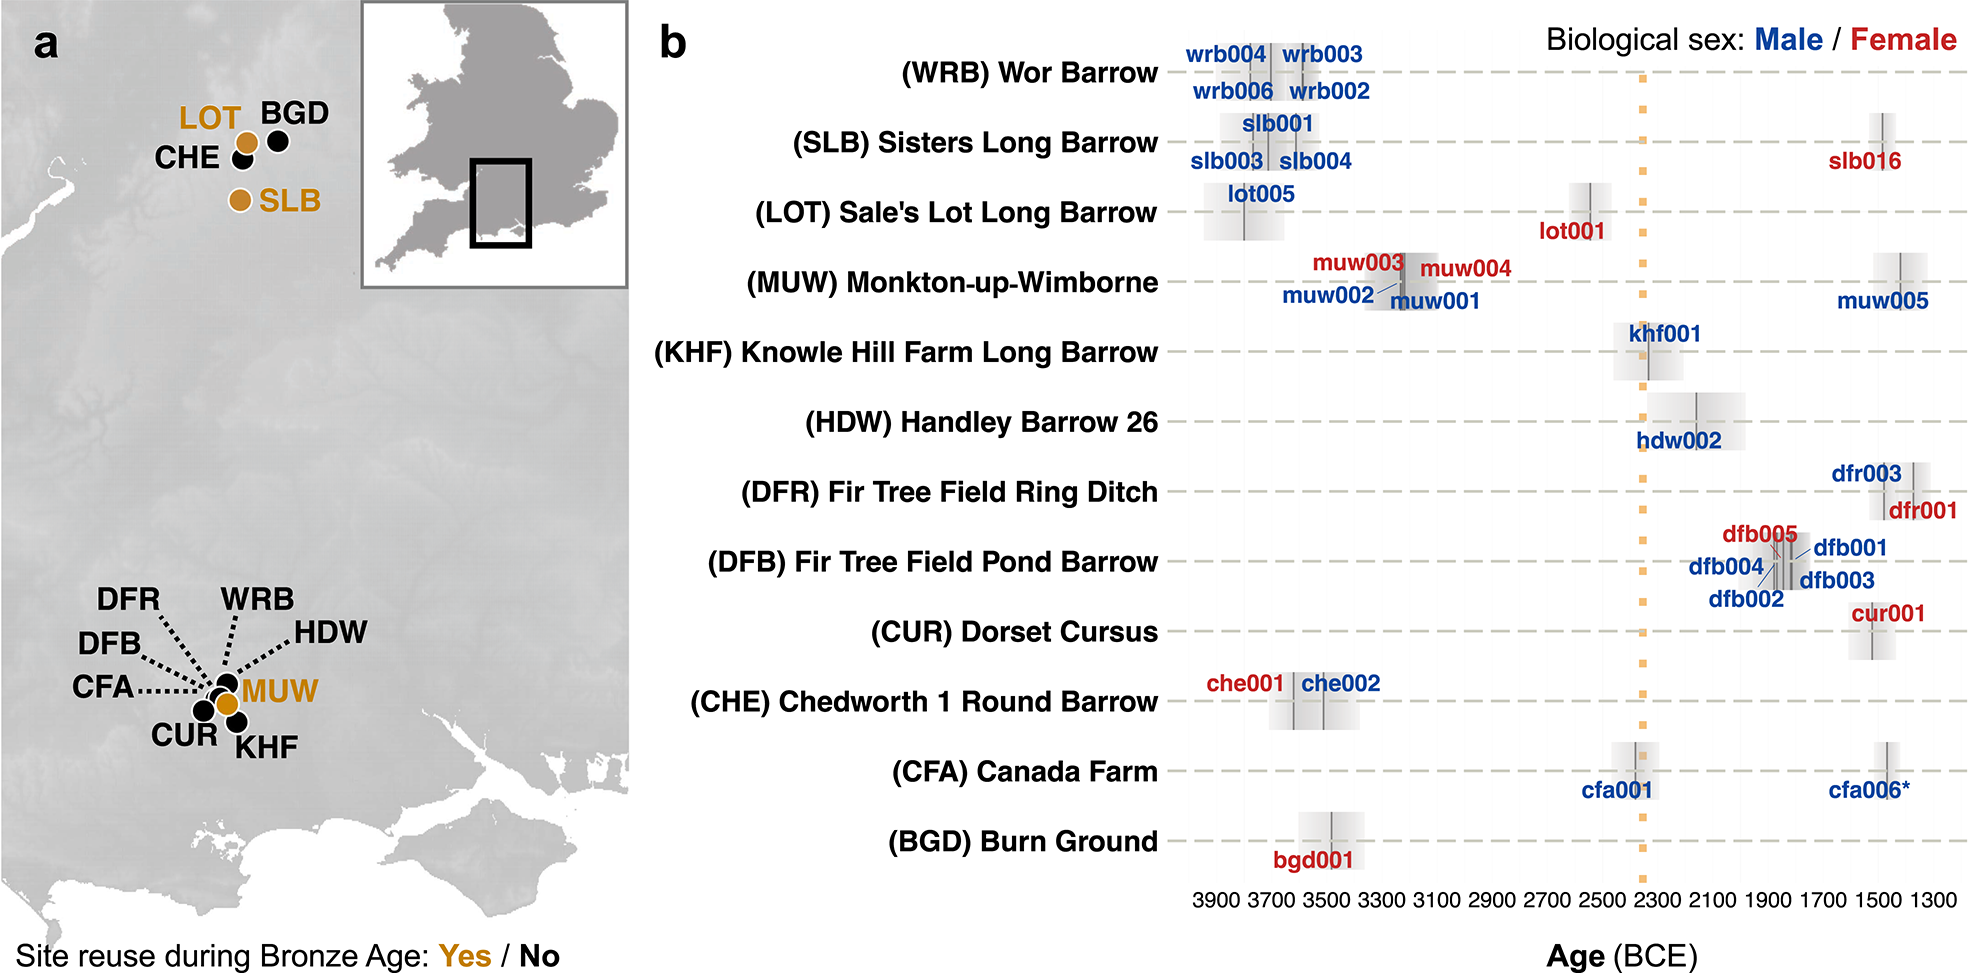
イングランド南西部における経時的な人口集団の変化および多様な埋葬慣行との関係を調べるために、紀元前3800~紀元前1400年頃の12ヶ所の埋葬遺跡から、先史時代30個体のゲノムデータが生成および分析されました。この地域は象徴的で埋葬遺骸は多様で、古代ブリテン島での2000年にわたる大金人口統計学的置換を追跡できます。祖先系統を直接的な放射性炭素年代測定および遺跡ごとの考古学的背景と組み合わせることによって、本研究は長年の考古学的問題を直接的に検証します。その問題とは、前期新石器時代遺構の二次的再利用は在来の子孫人口集団における連続性、もしくは新たに到来した集団による劉曄を反映しているのかどうかです(図1)。以下は本論文の図1です。
●資料と手法
合計で、12ヶ所の考古学的遺跡と異なる文化的背景を表す30個体の遺骸が、標本抽出されました(表1)。ヒト遺骸は以下の機関に収蔵されており、試料の標本抽出も許可されました。ボーンマス大学では、バーン・グラウンド(bgd001)、チェッドワース(che001、che002)、セールズ・ロット(lot001、lot005)、姉妹長形墓(slb001、slb003、slb004、slb016)です。ダウン・ファーム博物館では、カナダ・ファーム(cfa001、cfa006)、ドーセット・カーサス(cur001)、ファー・ツリー・フィールド塚(dfb001、dfb002、dfb003、dfb004、dfb005)、ファー・ツリー・フィールド周溝(dfr001、dfr003)、ハンドレー塚(hdw002)、ノール・ヒル・ファーム(khf001)、モンクトン・アップ・ウィンボーン(muw005)です。ソールズベリー博物館では、モンクトン・アップ・ウィンボーン(muw001、muw002、muw003、muw004、これらの遺骸はダウン・ファーム博物館から移管されました)、ウォー塚(wrb002、wrb003、wrb004、wrb006)です。
骨片でDNA抽出が実行され、先行研究の実施要綱[34、36]に従って、二本鎖ライブラリが生成されました。これらのライブラリの品質が確認され、全ゲノムショットガン配列決定が実行されました。データはヒト参照ゲノムhs37d5に配列されました。35塩基対未満および/もしくは参照ゲノムとの一致が90%未満の読み取りは除去されました。124万かしょの塩基転換(ピリミジン塩基とプリン塩基との間の置換)部位が疑似半数体形式で呼び出され、下流分析の前に、最終的にAADRデータセット[37]と統合されました。
●分析結果
紀元前3800~紀元前1400年頃の異なる文化的背景から発掘された、イングランド南西部の古代人30個体からゲノム配列(平均ゲノム被覆度は0.26倍)が生成されました(表1)。埋葬の種類は、比較的単純な溝および穴から、精巧な長形墓までさまざまでした。配列決定されたDNAは、死後損傷の兆候と100塩基対未満の断片長を示し、これは古代DNAと一致します。合計23個体は、核ゲノムの平均網羅率が0.1倍超でした。全個体のミトコンドリアの被覆度は1倍超(中央値は25.36倍)で、調査対象の全個体が低水準のミトコンドリアの汚染(0.10~9.39%)を示しました。2個体(cfa006とkhf001)は常染色体被覆度水準が低く(それぞれ、0.014倍と0.021倍)、最高水準のミトコンドリア汚染(それぞれ、9.39%と6.65%)を示しました。これらの2個体はPCAでは使用されましたが、その後の集団ゲノム分析からは除外されました。30個体のうち、21個体はXYの核型(男性)、9個体はXX(女性)の核型でした(表1)。
イングランド南西部の個体群他の地域および期間の比較対象の個体群[5、11、17、18、20、22、23、37~45、47~50、52]における遺伝的類似性と階層構造を視覚化するために、最初の2主成分のPCA図が生成されました(図2a)。ゲノムデータは調査対象の個体間の異なる2クラスタ(まとまり)を明らかにしており、大まかには、(1)ブリテン島とアイルランド島を含めて新石器時代にヨーロッパに居住していた個体群と、(2)ブリテン諸島を含めてヨーロッパに青銅器時代に居住しており、鐘形杯文化層準と関連づけられることが多い個体群です。イングランド南西部新石器時代個体群は遺伝的に、ANFおよびサルデーニャ島現代人と類似していました。銅器時代および青銅器時代のイングランド南西部のより新しい個体群は遺伝的に、青銅器時代および鉄器時代のイングランドの他の個体群や現在のイギリス人と類似していました。これらの個体は、ヤムナヤ文化と関連する、ポントス草原地帯の個体群との遺伝的類似性を示しており、それは後期新石器時代および初期青銅器時代における東方から西方への大規模な遺伝子流動に起因します[19、20、23]。これらの遺伝的類似性は、f₄統計を用いた、ANFとポントス草原地帯ヤムナヤ文化個体群との間のイングランド南西部個体群の対比によって、さらに定量化されました(図2b)。紀元前3100年頃以前の全個体はANFとの類似性を示した(大半はZ > 3を示します)のに大した、より新しい紀元前2550年頃の全個体は、ポントス草原地帯のヤムナヤ文化個体群との遺伝的類似性(大半はZ < -3を示します)を示しました(図2b)。以下は本論文の図2です。
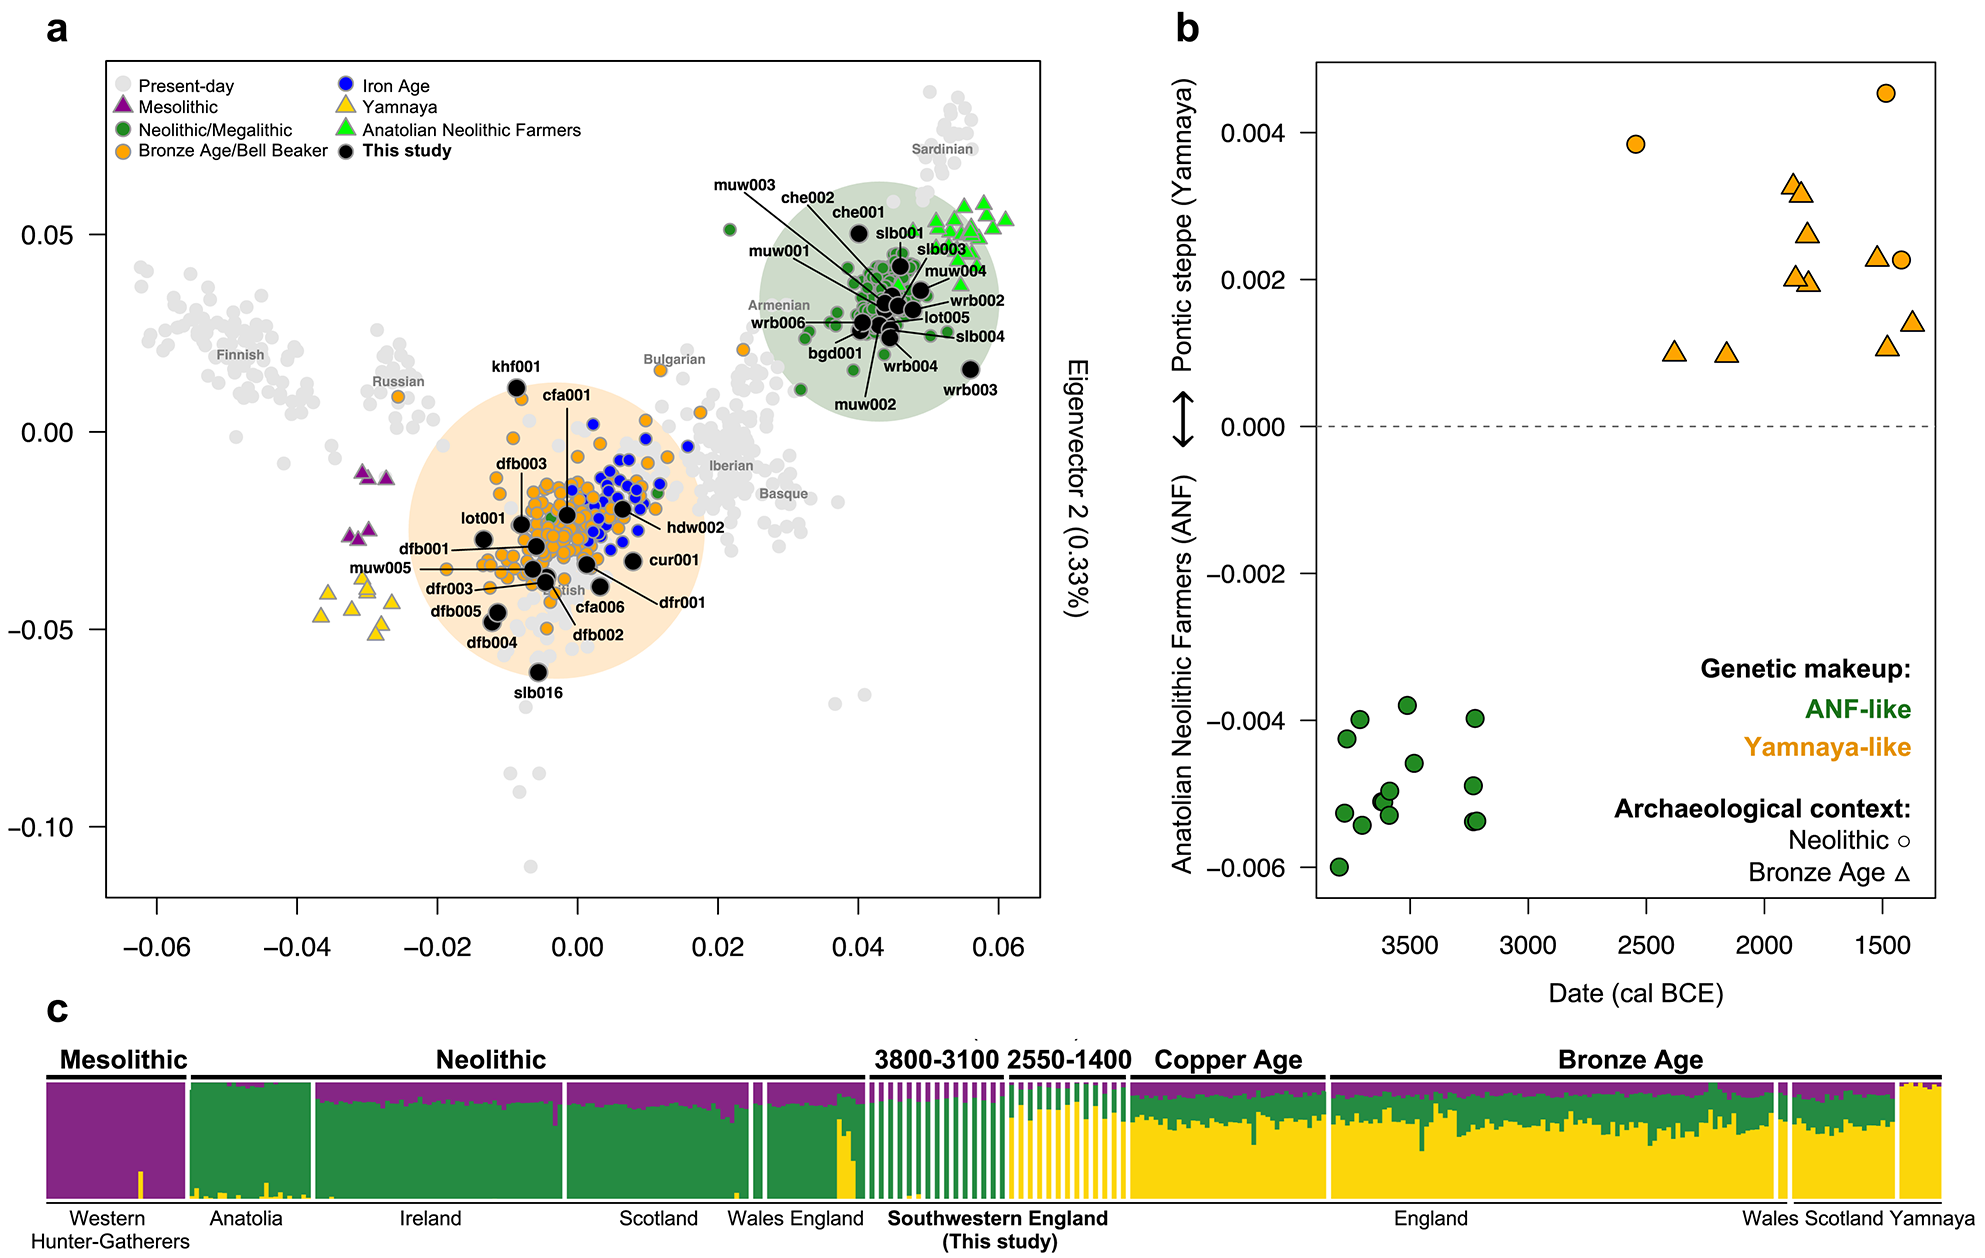
遺伝的祖先系統構成要素は、イングランド南西部の個体群やヨーロッパ本土全域の比較対象個体群一式について、ADMIXTUREを用いて推定されました。紀元前3800~紀元前3100年頃の間に生きていたイングランド南西部の個体群(表1)は、他の新石器時代集団とも共有されている高い割合の構成要素(図2cの緑色)と、中石器時代WHGと共有されている小さな割合の構成要素(紫色)示します。紀元前2550~紀元前1400年頃の間のイングランド南西部の個体群、他のヨーロッパ青銅器時代集団にも存在し、ポントス草原地帯からの移住(ヤムナヤ文化と関連する人々)と関連する祖先系統構成要素(図2cの橙色)を有しており、紀元前3100~紀元前2550年頃の間のイングランド南西部への新たな人々の大規模な流入が示唆されます。紀元前2550~紀元前1400年頃の間のイングランド南西部個体群は、新石器時代農耕民およびWHGと関連する中程度の祖先系統構成要素も示しています。このパターンはブリテン諸島[23]とヨーロッパ大陸部[19、20]の両方の他の青銅器時代集団で以前に観察されてきており、新参者と在来者との間の遺伝子流動が示唆されます。
ブリテン島新石器時代個体群の遺伝的祖先系統は2供給源に由来するとモデル化でき[19]、それは初期ヨーロッパ農耕民関連集団(たとえば、LBK_シュトゥットガルト[5])およびWHG関連集団(たとえば、ロシュブール遺跡個体[5])で、人口構造の結果(図2)と一致します。紀元前2550年頃以後の個体には追加の草原地帯関連祖先系統構成要素(ヤムナヤ文化個体群[18、19、22、52])が必要で、新たな祖先系統構成要素が新参者とともに到来したことと一致します[23]。
青銅器時代個体群が在来のブリテン島新石器時代集団と明確に関連する祖先系統を保持していたのかどうか、本研究の在来新石器時代個体群とドイツの大陸部鐘形杯文化関連個体群の混合としてモデル化することによって、さらに検証されした。ほとんどの紀元前2550年頃以後の個体は、おもに鐘形杯文化関連祖先系統を有することと一致しました。個体水準の結果は、一部の事例で追加の在来新石器時代関連構成要素を有することと一致し、局所的混合の可能性が示唆されます。しかし、この証拠を注意深く解釈すべきなのは、くいつかの推定値が不確実だからで、在来新石器時代関連構成要素の信頼区間はゼロと重なり、ゲノム被覆度は個体間で異なります。
埋葬共同体が生物学的近縁性によって構成されていたのかどうか、調べるために、充分なSNP重複を有する新石器時代個体群と青銅器時代個体群における親族関係(READ第2版)が推定されました。分析の結果、モンクトン・アップ・ウィンボーン遺跡において4個体の親族クラスタ(まとまり)が特定されました(muw001、muw002、muw003、muw004、紀元前3360~紀元前3100年頃)。1親等の関係の2組は、キョウダイの組み合わせ(4万ヶ所超のSNPで、muw001とmuw002、muw001とmuw004)と確実に解明されました。この4個体はすべてmtHg-K1aを示しており(表1)、共通の母系祖先が示唆されます。男性2個体(muw001とmuw002)は同じYHg(I2a2a)も有しています(表1)。他の1親等の組み合わせは、少ないSNP重複のため、キョウダイもしくは親子関係と分類することはできませんでした。
●考察
ブリテン島およびアイルランド島のさまざまな新石器時代および青銅器時代人口集団のゲノム分析が以前に実行されてきましたが[17、18、23、39]、イングランド南西部の考古学的遺物の豊富な地域は、地域的観点から徹底的に調べられてきたわけではありませんでした。30個体(12ヶ所の埋葬遺跡、約2700年の時間横断区)のゲノムデータは、紀元前3100~紀元前2550年頃のある時点での遺伝的置換のパターンを明らかにしています。この遺伝的置換から、ブリテン諸島へと、新たな人類集団が到来し、鐘形杯文化をもたらしたことが示され、これは先行研究[23]と一致します。
●新たな到来:イングランド南西部における4500年前頃の検出可能な変化
調査対象の個体群の遺伝的データは、時期によって分かれる二つの異なる遺伝的類似性を示します。これら二つの異なる遺伝的類似性はおおむね、埋葬遺跡の骨学的分類および考古学的背景と相関しています。しかし、調査対象の12ヶ所の埋葬遺跡のうち、3ヶ所は明らかに長期間の後に再利用されていました(モンクトン・アップ・ウィンボーン、姉妹長形墓、セールズ・ロット長形墓)。最初は、ヨーロッパ新石器時代農耕民と類似した遺伝的構成の個体群によって使用されていましたが、その後の埋葬は異なる祖先系統の存在を示唆しており、遺伝的には鐘形杯文化と関連する個体群と類似しています。後者の集団の遺伝的構成には、ヨーロッパ新石器時代農耕民と関連する約20%の祖先系統が含まれます(図2c)。しかし、ヨーロッパ本土の同時代の個体群は同じパターンを示すので、この移民はブリテン諸島に到来する前に新石器時代農耕民から遺伝的祖先系統構成要素を獲得したかもしれません。したがって、中程度の新石器時代農耕民関連遺伝的構成要素の観察は、イングランド南西部における局所的混合の判断には使用できません。先行研究[18、21、23]と一致して本論文では、紀元前2550年頃以降の全個体における主要な祖先系統構成要素は、5000年前頃にヨーロッパ中央部へと拡大し始めたポントス草原地帯に居住していた集団にたどる、と結論づけられます[59]。
●グロスターシャー県のセールズ・ロット長形墓における二次埋葬
セールズ・ロット長形墓におけるコッツウォルド=セバーン様式の女性1個体(lot001)の遺伝学的分析は、鐘形杯文化と関連する個体群と一致する遺伝的特性(およびmtHg-H6a1b)を明らかにしました[18、23、60]。その遺骸の放射性炭素年代測定は紀元前2622~紀元前2467年頃で、鐘形杯文化と関連する移民集団と関係している1個体のブリテン諸島における最古級の埋葬の一つとなります。「塚の中核の中心部へと彫り込まれた」と報告され、杯および同製品の破片が伴っていたこの個体は、一方でブリテン島における最初期の杯埋葬の一例を表しているかもしれません。しかし、別の可能性があり、それは、ヒト遺骸が長期間補完され、塚への最終的な埋葬の時期には、その遺体はともに安置された副葬よりかなり古いことです。この後者の可能性はドーセット州のカナダ・ファームで証明されており、円形墓の下の木棺の一次埋葬は、関連する副葬品よりかなり古いと論証されており、各遺骸は埋葬前に何世代にもわたって補完されていた、と示唆されます。興味深いことに、カナダ・ファームの遺骸の放射性炭素年代の範囲はセールズ・ロットとほぼ同じで、得られた2点の年代のうち一方は紀元前2620~紀元前2470年頃でした。
セールズ・ロットま埋葬の事例でこれらの可能性のうちどれが正しいのかに関わらず、この女性個体がブリテン島への第一世代の移民だった可能性は充分にあり、それは古代の長形墓の埋葬形式でこの個体の遺骸が特別に扱われたことを説明できるかもしれません。この明らかに尊重された個体が女性だった事実は、男性が移住して「結婚」したか、少なくとも在来女性と子供を儲けたのではなく、初期の金属器使用社会における女性の地位、および女性がどの程度活発に移住に関わっていたのかの両方について、問題を提起します。
●ドーセット州のモンクトン・アップ・ウィンボーンにおける家族埋葬の1500年後の再利用
モンクトン・アップ・ウィンボーン中期新石器時代遺跡の考古学的報告では、大きく平底の中心部の特徴が指摘されており、幅は約10m、深さは約1.5mで、直径約35mに並ぶ14基の広く間隔を摂った長円形の土坑によって囲まれています。中心部の遺構の掘削は、白亜層における自然な水平節理面で意図的に停止されており、ひじょうに平坦な底面が形成されました。この底面は、深さ約7mの先細の坑と、本論文で考察された4ヶ所の埋葬を含む長円形の墓によって、後に切り離されました。埋葬後に、この墓は白亜の破片で丁寧に埋め戻され、徹底的に突き固められました。
単一の長円形墓から、埋葬遺構の建造と同時代の4個体の遺骸が発掘されました。これらの個体(muw001、muw002、muw003、muw004)間の密接な遺伝的関係の調査によって、男性2個体と女性2個体の間の1親等の親族関係が見つかり、(両親が同じ)全キョウダイと一致する2組(muw001とmuw002、muw001とmuw004)が含まれます。
この4個体すべてのmtHgは、鐘形杯文化の到来と関連する遺伝的置換の前にブリテン島で一般的だった[11、18、23]、K1a系統内に属します。これらの観察に基づき、放射性炭素年代の重複(紀元前3364~紀元前3093年頃)と合わせると、2組の関係の配置で最も節約的なのは、4個体すべてが全キョウダイか、成人の母親(年齢は30~45歳)と3人の子供(年齢はそれぞれ5歳と9歳と10歳程度)です。骨学的評価は、成人女性1個体と亜成体3個体を特定しました。埋葬が建造された遺構内に安置され、その後で覆われたことを考えると、モンクトン・アップ・ウィンボーンが単に家族埋葬として機能したのか、あるいは新石器時代ブリテン島の社会的動態内でより広範な重要性を有していたのかどうかは、依然として不明です。
注目すべきことに、新石器時代の親族集団の埋葬から1500年以上後に、同じ埋葬遺構が親族関係にない男性(muw005、紀元前1519~紀元前1321年頃)のために再利用され、muw005の遺伝的特性はこの間に典型的で、鐘形杯文化関連祖先系統と一致します(図2)。muw005は以前の中央部の切断内の中心に安置され、小さな燧石製の塚によって覆われており、意図的なその後の再利用が示唆されます。この段階までに、遺構は景観の中で水を湛える窪地として存続していたかもしれず、稀な大まかには同時代の窪塚が同じ土地で発掘されました。したがって、新石器時代の家族埋葬の1500年以上後に、異なる人口集団および文化的背景の男性1個体が、モンクトン・アップ・ウィンボーンで埋葬されました。
●グロスターシャー県の姉妹長形墓における再利用
姉妹長形墓では、再利用の同様のパターンが観察されました。姉妹長形墓では、男性3個体の遺骸(紀元前3782~紀元前3643年頃のslb001、紀元前3888~紀元前3647年頃のslb003、紀元前3697~紀元前3527年頃のslb004)が、塚の東端内に構築された石棺で、混在する関節の外れた遺骸群の中に堆積しており、複数段階での埋葬慣行の複雑なパターンの結果である可能性が高そうです。その2000年後(紀元前1534~紀元前1436年頃)に、若い成人女性1個体(slb006)が、石塚の頂部に造られた窪み状の墓に埋葬されました。それ以前の被葬者が同時代の新石器時代個体群に典型的な遺伝的祖先系統を示したのに対して、その後の個体群は鐘形杯文化と関連する期間の他の個体群と類似した遺伝的構成を示しました(図2)。
●まとめ
古代の墓のその後の埋葬慣行への利用および取り込みは以前に指摘されていましたが、この慣行の範囲がどのくらい広がっていたのかは、依然として不明です。本論文では特定された3事例では、青銅器時代個体群が、元々は遺伝的に異なる集団によって新石器時代に建造された埋葬地に葬られていました。比較データは、新石器時代(紀元前5500~紀元前2550年頃)と銅器時代および青銅器時代(紀元前2550~紀元前800年頃)の両方と直接的に放射性炭素年代測定された個体群が見つかった、ブリテン諸島の5ヶ所の遺跡をさらに明らかにしており、以前の埋葬地のその後の再利用は本論文で報告された遺跡群に限られていなかった、と示唆されます。
埋葬の利用における長期間の空白後に、これらの埋葬地が再び利用されたことから、すでに古代の埋葬遺構がその殿集団にとって社会的および象徴的意義を保持しており、その後の集団が自身をより古い景観内に定着させるか、想像上の祖先との関係を想起したかもしれない、と示唆されます。比較対象として利用可能な直接的に年代測定された個体と埋葬遺跡の数が限られていることを考えると、この解釈には依然として慎重であるべきです。
本論文の調査結果は、標本抽出と保存状態の偏りにも影響を受けているかもしれません。異なる遺伝的特性の鐘形杯文化関連個体群は、その埋葬が考古学的により可視化されているか、社会的に際立っていた場合、過大評価されているかもしれません。逆に、それ以前の新石器時代人口集団からのより大きな連続性の個体群は、その埋葬がさほど目立たなかったか、まだ発見されていないか、考古学的に可視的な埋葬状況で安置されなかったなにば、遺伝学的に過小評価されたままかもしれません。
それにも関わらず、そうした標本抽出の偏りが存在するとしても、重要な観察は依然として影響を受けておらず、本論文で調査対象の再利用された新石器時代の埋葬遺構には、祖先系統が元々の建造者と大きく異なる、1000年以上後に埋葬された個体群が含まれています。ブリテン島の他地域の現時点データも、草原地帯関連祖先系統を欠いている集団のかなり長期の存続の明確な証拠を提供していません[18、21、23]。
より広く見ると、新石器時代の巨石埋葬遺構の再利用はヨーロッパ大陸部全域で報告されており[20、30~32]、各地の同様の事例が局所的連続性か人口置換かより複雑な形態の相互作用を反映しているのかどうか、との問題を提起しています。埋葬遺構の再利用における性別や区よりの可能性も依然として未解明で、それは、セールズ・ロットと姉妹長形墓とモンクトン・アップ・ウィンボーンにおける二次埋葬が、成人女性2個体と男性1個体で較正されているからです。しかし、確実な結論を導くには、標本規模が小さすぎます。
遺伝学的および考古学的証拠の統合によって、本論文は個々の墓およびより広範な地域的景観にわたって、イングランド南西部における大きな人口統計学的変化を追跡します。後の共同体による以前の埋葬遺構のさいりようは考古学的に認識されてきましたが、これら後の個体群が元々の利用者の子孫だったのか、あるいは新たに到来した集団の構成員だったのかは、依然として議論になっています。本論文は、この問題が遺跡単位および地域的規模の両方で直接的に検証できることを示します。
ブリテン島南西部では祖先系統における顕著な変化が場所の利用と意味における連続性を伴っており、最初の農耕民によって作られた景観が、元々の共同体を超えて、社会的生命を獲得し、その共同体の消滅後に長く存続した、と示唆されます。
参考文献:
Vuković N. et al.(2026): Diachronic reuse of Neolithic burial monuments by Bronze Age newcomers in Southwestern Britain. Scientific Reports, 16, 26819.
https://doi.org/10.1038/s41598-026-66094-z
[5]Lazaridis I. et al.(2014): Ancient human genomes suggest three ancestral populations for present-day Europeans. Nature, 513, 7518, 409–413.
https://doi.org/10.1038/nature13673
関連記事
[11]Sánchez-Quinto F. et al.(2019): Megalithic tombs in western and northern Neolithic Europe were linked to a kindred society. PNAS, 116, 19, 9469–9474.
https://doi.org/10.1073/pnas.1818037116
関連記事
[15]Fowler C. et al.(2022): A high-resolution picture of kinship practices in an Early Neolithic tomb. Nature, 601, 7894, 584–587.
https://doi.org/10.1038/s41586-021-04241-4
関連記事
[17]Brace S. et al.(2019): Ancient genomes indicate population replacement in Early Neolithic Britain. Nature Ecology & Evolution, 3, 5, 765–771.
https://doi.org/10.1038/s41559-019-0871-9
関連記事
[18]Patterson N. et al.(2022): Large-scale migration into Britain during the Middle to Late Bronze Age. Nature, 601, 7894, 588–594.
https://doi.org/10.1038/s41586-021-04287-4
関連記事
[19]Haak W. et al.(2015): Massive migration from the steppe was a source for Indo-European languages in Europe. Nature, 522, 7555, 207–211.
https://doi.org/10.1038/nature14317
関連記事
[20]Allentoft ME. et al.(2015): Population genomics of Bronze Age Eurasia. Nature, 522, 7555, 167–172.
https://doi.org/10.1038/nature14507
関連記事
[21]Allentoft ME. et al.(2024): Population genomics of post-glacial western Eurasia. Nature, 625, 7994, 301–311.
https://doi.org/10.1038/s41586-023-06865-0
関連記事
[22]Narasimhan VM. et al.(2019): The formation of human populations in South and Central Asia. Science, 365, 6457, eaat7487.
https://doi.org/10.1126/science.aat7487
関連記事
[23]Olalde I. et al.(2018): The Beaker phenomenon and the genomic transformation of northwest Europe. Nature, 555, 7695, 190–196.
https://doi.org/10.1038/nature25738
関連記事
[30]Malmström H. et al.(2019): The genomic ancestry of the Scandinavian Battle Axe Culture people and their relation to the broader Corded Ware horizon. Proceedings of the Royal Society B, 286, 1912, 20191528.
https://doi.org/10.1098/rspb.2019.1528
関連記事
[31]Seersholm FV. et al.(2024): Repeated plague infections across six generations of Neolithic Farmers. Nature, 632, 8023, 114–121.
https://doi.org/10.1038/s41586-024-07651-2
関連記事
[32]Allentoft ME. et al.(2024): 100 ancient genomes show repeated population turnovers in Neolithic Denmark. Nature, 625, 7994, 329–337.
https://doi.org/10.1038/s41586-023-06862-3
関連記事
[34]Günther T, Malmström H, Svensson EM, Omrak A, Sánchez-Quinto F, Kılınç GM, et al. (2018) Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation. PLoS Biol 16(1): e2003703.
http://dx.doi.org/10.1371/journal.pbio.2003703
関連記事
[36]Günther T. et al.(2015): Ancient genomes link early farmers from Atapuerca in Spain to modern-day Basques. PNAS, 112, 38, 11917–11922.
https://doi.org/10.1073/pnas.1509851112
関連記事
[37]Mallick S. et al.(2024): The Allen Ancient DNA Resource (AADR) a curated compendium of ancient human genomes. Scientific Data, 11, 182.
https://doi.org/10.1038/s41597-024-03031-7
関連記事
[38]Bergström A. et al.(2020): Insights into human genetic variation and population history from 929 diverse genomes. Science, 367, 6484, eaay5012.
https://doi.org/10.1126/science.aay5012
関連記事
[39]Cassidy LM. et al.(2020): A dynastic elite in monumental Neolithic society. Nature, 582, 7812, 384–388.
https://doi.org/10.1038/s41586-020-2378-6
関連記事
[40]Fu Q. et al.(2016): The genetic history of Ice Age Europe. Nature, 534, 7606, 200–205.
https://doi.org/10.1038/nature17993
関連記事
[41]Mathieson I. et al.(2015): Genome-wide patterns of selection in 230 ancient Eurasians. Nature, 528, 7583, 499–503.
https://doi.org/10.1038/nature16152
関連記事
[42]Olalde I. et al.(2019): The genomic history of the Iberian Peninsula over the past 8000 years. Science, 363, 6432, 1230-1234.
https://doi.org/10.1126/science.aav4040
関連記事
[43]Antonio ML. et al.(2019): Ancient Rome: A genetic crossroads of Europe and the Mediterranean. Science, 366, 6466, 708–714.
https://doi.org/10.1126/science.aay6826
関連記事
[44]Brunel S. et al.(2020): Ancient genomes from present-day France unveil 7,000 years of its demographic history. PNAS, 117, 23, 12791–12798.
https://doi.org/10.1073/pnas.1918034117
関連記事
[45]Fernandes DM. et al.(2020): The spread of steppe and Iranian-related ancestry in the islands of the western Mediterranean. Nature Ecology & Evolution, 4, 3, 334–345.
https://doi.org/10.1038/s41559-020-1102-0
関連記事
[47]Jones ER. et al.(2015): Upper Palaeolithic genomes reveal deep roots of modern Eurasians. Nature Communications, 6, 8912.
https://doi.org/10.1038/ncomms9912
関連記事
[48]Mittnik A. et al.(2019):Kinship-based social inequality in Bronze Age Europe. Science, 366, 6466, 731–734.
https://doi.org/10.1126/science.aax6219
関連記事
[49]Rivollat M. et al.(2020): Ancient genome-wide DNA from France highlights the complexity of interactions between Mesolithic hunter-gatherers and Neolithic farmers. Science Advances, 6, 22, eaaz5344.
https://doi.org/10.1126/sciadv.aaz5344
関連記事
[50]Mallick S. et al.(2016): The Simons Genome Diversity Project: 300 genomes from 142 diverse populations. Nature, 538, 7624, 201–206.
https://doi.org/10.1038/nature18964
関連記事
[52]Mathieson I. et al.(2018): The genomic history of southeastern Europe. Nature, 555, 7695, 197–203.
https://doi.org/10.1038/nature25778
関連記事
[59]Saag L. et al.(2021): Genetic ancestry changes in Stone to Bronze Age transition in the East European plain. Science Advances, 7, 4, eabd6535.
https://doi.org/10.1126/sciadv.abd6535
関連記事
[60]Martiniano R. et al.(2016): Genomic signals of migration and continuity in Britain before the Anglo-Saxons. Nature Communications, 7, 10326.
https://doi.org/10.1038/ncomms10326
関連記事
以下の略称は、DNA(deoxyribonucleic acid、デオキシリボ核酸)、mtDNA(mitochondrial DNA、ミトコンドリアDNA)、mtHg(mtDNA haplogroup、ミトコンドリアDNAハプログループ)、YHg(Y-chromosome DNA haplogroup、Y染色体DNAハプログループ)、SNP(Single Nucleotide Polymorphism、一塩基多型)、AADR(The Allen Ancient DNA Resource、アレン古代DNA情報源)、PCA(principal component analysis、主成分分析)、ANF(Anatolian Neolithic Farmer、アナトリア半島新石器時代農耕民)、WHG(Western Hunter-Gatherer、西方狩猟採集民)、m(metre、meter、メートル)、READ(Relationship Estimation from Ancient DNA、古代DNAの関係推定)です。本論文で取り上げられる主要な文化は、鐘状ビーカー(Bell Beaker 、鐘形杯、略してBB)文化、ヤムナヤ(Yamnaya)文化、縄目文土器(Corded Ware)文化、線形陶器(Linear Pottery、Linearbandkeramik、略してLBK)文化、コッツウォルド=セバーン(Cotswold-Severn)様式です。
本論文で取り上げられるイギリスの主要な遺跡と地域は、バーン・グラウンド(Burn Ground、略してbgd)、チェッドワース(Chedworth、略してche)、グロスターシャー(Gloucestershire)県のセールズ・ロット(Sale’s Lot、略してlot)、姉妹長形墓(Sisters Long Barrow、略してslb)、ドーセット(Dorset)州のカナダ・ファーム(Canada Farm、略してcfa)、ドーセット・カーサス(Dorset Cursus、略してcur)、ファー・ツリー・フィールド塚(Fir Tree Field Pond Barrow、略してdfb)、ファー・ツリー・フィールド周溝(Fir Tree Field Ring Ditch、略してdfr)、ハンドレー塚(Handley Barrow、略してhdw)、ノール・ヒル・ファーム(Knowle Hill Farm、略してkhf)、モンクトン・アップ・ウィンボーン(Monkton-up-Wimborne、略してmuw)、ウォー塚(Wor Barrow、略してwrb)です。本論文で取り上げられるイギリス以外の主要な遺跡と地域は、ドイツのシュトゥットガルト(Stuttgart)、ルクセンブルクのロシュブール(Loschbour)、です。
●要約
初期農耕共同体の拡大は紀元前4000年頃に初めてブリテン島に到達し、最終的には在来の採食民を置換もしくは吸収しました。その2000年後、鐘形杯文化と関連する別の移住の波が、再びブリテン島の遺伝的および社会文化的景観を変えました。イングランド南西部は先史時代の埋葬遺構が豊富で、その一部の年代は前期新石器時代以降となり、その多くは後に鐘形杯文化期や青銅器時代において再利用されました。イングランド南西部の12ヶ所の遺跡の紀元前3800~紀元前1400年頃の30個体のゲノムが分析され、紀元前3000~紀元前2500年頃の急激な遺伝的変化が特定されました。紀元前3100年頃以前の全個体遺伝的にヨーロッパ新石器時代農耕民と類似していたのに対して、紀元前2500年頃以後の個体は遺伝的にブリテン島の鐘形杯文化と関連する人々と類似していました。3ヶ所の遺跡では、青銅器時代の個体は、遺伝的に異なる新石器時代共同体によって1000年以上前に元々は構築された遺構に埋葬されていました。これらの遺構の元々の建造者および利用者の明確な文化的もしくは生物学的関連が欠如していた、この埋葬活動の第二の波は、侵入者もしくは後の集団による、自身をすでに確立した景観に定着させ、それ以前の埋葬地の象徴的権威に依拠する、試みを反映しているかもしれません。本研究は、新石器時代~青銅器時代の移行期にまたがる、ブリテン島南西部の、最初の体系的な地域的古代ゲノム横断調査を提供します。この地域は、考古学的痕跡は豊富ながら、以前には集団ゲノムの観点からは充分に研究されていませんでした。
●研究史
8000年前頃以降、大陸から地理的に切り離されていたブリテン諸島では、ヨーロッパ本土と比較して、異なる速度でヒトの移住と文化的変容がありました。人々の新たな集団がヨーロッパ大陸本土全域に農耕をもたらし[5]、この移住と変容はブリテン諸島にほぼ1000年遅れて到達しました[11]。この移行は栽培化された作物および家畜化された動物種や土器やとくに大規模な技師的遺構の構築に現れました。最古級で最も多く見られるのは細長い石もしくは土の塚で、紀元前四千年紀に築かれました。これらは一般的に集団埋葬の場所として使用されましたが、景観における規模と傑出性は別の重要性も示しており、領域の標識として機能した可能性が最も高そうです[15]。
これは、ヨーロッパ大陸全域における急速な変化ではなく、長く不均一な過程で、南東部から北部への数千年かけて侵攻しました。ブリテン島全体に浸透した、ブリテン島新石器時代と関連する文化的および遺伝的変化については、さらに2000年間を要しており[17]、「新石器時代農耕民」祖先系統(約75%)と「中石器時代採食民」祖先系統(約25%)の間の混合である遺伝的特性が生じました。ブリテン島における、栽培化および家畜化された資源への移行やその後の金属加工の到来は、ヨーロッパ本土と比較して相対的に遅くなり、それはヨーロッパの北西部周縁に位置していたことに起因する可能性が高そうです。
紀元前3000年頃、「ヤムナヤ」文化もしくは「土坑墓」文化と関連する遊牧民が、ポントス草原からヨーロッパへの移動を開始しました[18~22]。その後、在来新石器時代集団との混合が起き、しばしば、いわゆる縄目文土器と関連していました[19、20]。続いて、新たな文化的統合および表現が生じ、鐘形杯文化と命名され[23]、数世紀以内にブリテン島に到達しました。この移住の直後には、ポントス草原地帯関連祖先系統がブリテン諸島の人々の遺伝的組成の大きな割合を占めていました[23]。
選ばれた個体が、長形墓と呼ばれることが多い、共同埋葬構造物に安置された前期新石器時代の埋葬慣行は、紀元前3500年頃に使用が途絶え、あらゆる種類の埋葬が比較的稀な500年以上にわたる期間が続きました。この中断を経て、個人協調への移行がありましたが、再び選別的なやり方が明らかで、それは、発掘された埋葬の数が、全体的な人口の一部しか表していない可能性があるからです。単一の個体の埋葬に重点を置いた円形墓の新たな形態が現れましたが、そこが死者を埋葬する唯一の場所ではありませんでした。紀元前竿千年紀後半および紀元前二千年紀前半に繰り返された埋葬事例として、その時点ですでに1000年以上経過していたそれ以前の新石器時代の遺構に、追加の埋葬がありました。新石器時代に起源がある巨石埋葬記念建造物の継続的利用は、ヨーロッパ大陸全域で観察されましたが[20、30~32]、経時的な埋葬された個体間の関係はよく理解されていませんでした。
イングランド南西部における経時的な人口集団の変化および多様な埋葬慣行との関係を調べるために、紀元前3800~紀元前1400年頃の12ヶ所の埋葬遺跡から、先史時代30個体のゲノムデータが生成および分析されました。この地域は象徴的で埋葬遺骸は多様で、古代ブリテン島での2000年にわたる大金人口統計学的置換を追跡できます。祖先系統を直接的な放射性炭素年代測定および遺跡ごとの考古学的背景と組み合わせることによって、本研究は長年の考古学的問題を直接的に検証します。その問題とは、前期新石器時代遺構の二次的再利用は在来の子孫人口集団における連続性、もしくは新たに到来した集団による劉曄を反映しているのかどうかです(図1)。以下は本論文の図1です。
●資料と手法
合計で、12ヶ所の考古学的遺跡と異なる文化的背景を表す30個体の遺骸が、標本抽出されました(表1)。ヒト遺骸は以下の機関に収蔵されており、試料の標本抽出も許可されました。ボーンマス大学では、バーン・グラウンド(bgd001)、チェッドワース(che001、che002)、セールズ・ロット(lot001、lot005)、姉妹長形墓(slb001、slb003、slb004、slb016)です。ダウン・ファーム博物館では、カナダ・ファーム(cfa001、cfa006)、ドーセット・カーサス(cur001)、ファー・ツリー・フィールド塚(dfb001、dfb002、dfb003、dfb004、dfb005)、ファー・ツリー・フィールド周溝(dfr001、dfr003)、ハンドレー塚(hdw002)、ノール・ヒル・ファーム(khf001)、モンクトン・アップ・ウィンボーン(muw005)です。ソールズベリー博物館では、モンクトン・アップ・ウィンボーン(muw001、muw002、muw003、muw004、これらの遺骸はダウン・ファーム博物館から移管されました)、ウォー塚(wrb002、wrb003、wrb004、wrb006)です。
骨片でDNA抽出が実行され、先行研究の実施要綱[34、36]に従って、二本鎖ライブラリが生成されました。これらのライブラリの品質が確認され、全ゲノムショットガン配列決定が実行されました。データはヒト参照ゲノムhs37d5に配列されました。35塩基対未満および/もしくは参照ゲノムとの一致が90%未満の読み取りは除去されました。124万かしょの塩基転換(ピリミジン塩基とプリン塩基との間の置換)部位が疑似半数体形式で呼び出され、下流分析の前に、最終的にAADRデータセット[37]と統合されました。
●分析結果
紀元前3800~紀元前1400年頃の異なる文化的背景から発掘された、イングランド南西部の古代人30個体からゲノム配列(平均ゲノム被覆度は0.26倍)が生成されました(表1)。埋葬の種類は、比較的単純な溝および穴から、精巧な長形墓までさまざまでした。配列決定されたDNAは、死後損傷の兆候と100塩基対未満の断片長を示し、これは古代DNAと一致します。合計23個体は、核ゲノムの平均網羅率が0.1倍超でした。全個体のミトコンドリアの被覆度は1倍超(中央値は25.36倍)で、調査対象の全個体が低水準のミトコンドリアの汚染(0.10~9.39%)を示しました。2個体(cfa006とkhf001)は常染色体被覆度水準が低く(それぞれ、0.014倍と0.021倍)、最高水準のミトコンドリア汚染(それぞれ、9.39%と6.65%)を示しました。これらの2個体はPCAでは使用されましたが、その後の集団ゲノム分析からは除外されました。30個体のうち、21個体はXYの核型(男性)、9個体はXX(女性)の核型でした(表1)。
イングランド南西部の個体群他の地域および期間の比較対象の個体群[5、11、17、18、20、22、23、37~45、47~50、52]における遺伝的類似性と階層構造を視覚化するために、最初の2主成分のPCA図が生成されました(図2a)。ゲノムデータは調査対象の個体間の異なる2クラスタ(まとまり)を明らかにしており、大まかには、(1)ブリテン島とアイルランド島を含めて新石器時代にヨーロッパに居住していた個体群と、(2)ブリテン諸島を含めてヨーロッパに青銅器時代に居住しており、鐘形杯文化層準と関連づけられることが多い個体群です。イングランド南西部新石器時代個体群は遺伝的に、ANFおよびサルデーニャ島現代人と類似していました。銅器時代および青銅器時代のイングランド南西部のより新しい個体群は遺伝的に、青銅器時代および鉄器時代のイングランドの他の個体群や現在のイギリス人と類似していました。これらの個体は、ヤムナヤ文化と関連する、ポントス草原地帯の個体群との遺伝的類似性を示しており、それは後期新石器時代および初期青銅器時代における東方から西方への大規模な遺伝子流動に起因します[19、20、23]。これらの遺伝的類似性は、f₄統計を用いた、ANFとポントス草原地帯ヤムナヤ文化個体群との間のイングランド南西部個体群の対比によって、さらに定量化されました(図2b)。紀元前3100年頃以前の全個体はANFとの類似性を示した(大半はZ > 3を示します)のに大した、より新しい紀元前2550年頃の全個体は、ポントス草原地帯のヤムナヤ文化個体群との遺伝的類似性(大半はZ < -3を示します)を示しました(図2b)。以下は本論文の図2です。
遺伝的祖先系統構成要素は、イングランド南西部の個体群やヨーロッパ本土全域の比較対象個体群一式について、ADMIXTUREを用いて推定されました。紀元前3800~紀元前3100年頃の間に生きていたイングランド南西部の個体群(表1)は、他の新石器時代集団とも共有されている高い割合の構成要素(図2cの緑色)と、中石器時代WHGと共有されている小さな割合の構成要素(紫色)示します。紀元前2550~紀元前1400年頃の間のイングランド南西部の個体群、他のヨーロッパ青銅器時代集団にも存在し、ポントス草原地帯からの移住(ヤムナヤ文化と関連する人々)と関連する祖先系統構成要素(図2cの橙色)を有しており、紀元前3100~紀元前2550年頃の間のイングランド南西部への新たな人々の大規模な流入が示唆されます。紀元前2550~紀元前1400年頃の間のイングランド南西部個体群は、新石器時代農耕民およびWHGと関連する中程度の祖先系統構成要素も示しています。このパターンはブリテン諸島[23]とヨーロッパ大陸部[19、20]の両方の他の青銅器時代集団で以前に観察されてきており、新参者と在来者との間の遺伝子流動が示唆されます。
ブリテン島新石器時代個体群の遺伝的祖先系統は2供給源に由来するとモデル化でき[19]、それは初期ヨーロッパ農耕民関連集団(たとえば、LBK_シュトゥットガルト[5])およびWHG関連集団(たとえば、ロシュブール遺跡個体[5])で、人口構造の結果(図2)と一致します。紀元前2550年頃以後の個体には追加の草原地帯関連祖先系統構成要素(ヤムナヤ文化個体群[18、19、22、52])が必要で、新たな祖先系統構成要素が新参者とともに到来したことと一致します[23]。
青銅器時代個体群が在来のブリテン島新石器時代集団と明確に関連する祖先系統を保持していたのかどうか、本研究の在来新石器時代個体群とドイツの大陸部鐘形杯文化関連個体群の混合としてモデル化することによって、さらに検証されした。ほとんどの紀元前2550年頃以後の個体は、おもに鐘形杯文化関連祖先系統を有することと一致しました。個体水準の結果は、一部の事例で追加の在来新石器時代関連構成要素を有することと一致し、局所的混合の可能性が示唆されます。しかし、この証拠を注意深く解釈すべきなのは、くいつかの推定値が不確実だからで、在来新石器時代関連構成要素の信頼区間はゼロと重なり、ゲノム被覆度は個体間で異なります。
埋葬共同体が生物学的近縁性によって構成されていたのかどうか、調べるために、充分なSNP重複を有する新石器時代個体群と青銅器時代個体群における親族関係(READ第2版)が推定されました。分析の結果、モンクトン・アップ・ウィンボーン遺跡において4個体の親族クラスタ(まとまり)が特定されました(muw001、muw002、muw003、muw004、紀元前3360~紀元前3100年頃)。1親等の関係の2組は、キョウダイの組み合わせ(4万ヶ所超のSNPで、muw001とmuw002、muw001とmuw004)と確実に解明されました。この4個体はすべてmtHg-K1aを示しており(表1)、共通の母系祖先が示唆されます。男性2個体(muw001とmuw002)は同じYHg(I2a2a)も有しています(表1)。他の1親等の組み合わせは、少ないSNP重複のため、キョウダイもしくは親子関係と分類することはできませんでした。
●考察
ブリテン島およびアイルランド島のさまざまな新石器時代および青銅器時代人口集団のゲノム分析が以前に実行されてきましたが[17、18、23、39]、イングランド南西部の考古学的遺物の豊富な地域は、地域的観点から徹底的に調べられてきたわけではありませんでした。30個体(12ヶ所の埋葬遺跡、約2700年の時間横断区)のゲノムデータは、紀元前3100~紀元前2550年頃のある時点での遺伝的置換のパターンを明らかにしています。この遺伝的置換から、ブリテン諸島へと、新たな人類集団が到来し、鐘形杯文化をもたらしたことが示され、これは先行研究[23]と一致します。
●新たな到来:イングランド南西部における4500年前頃の検出可能な変化
調査対象の個体群の遺伝的データは、時期によって分かれる二つの異なる遺伝的類似性を示します。これら二つの異なる遺伝的類似性はおおむね、埋葬遺跡の骨学的分類および考古学的背景と相関しています。しかし、調査対象の12ヶ所の埋葬遺跡のうち、3ヶ所は明らかに長期間の後に再利用されていました(モンクトン・アップ・ウィンボーン、姉妹長形墓、セールズ・ロット長形墓)。最初は、ヨーロッパ新石器時代農耕民と類似した遺伝的構成の個体群によって使用されていましたが、その後の埋葬は異なる祖先系統の存在を示唆しており、遺伝的には鐘形杯文化と関連する個体群と類似しています。後者の集団の遺伝的構成には、ヨーロッパ新石器時代農耕民と関連する約20%の祖先系統が含まれます(図2c)。しかし、ヨーロッパ本土の同時代の個体群は同じパターンを示すので、この移民はブリテン諸島に到来する前に新石器時代農耕民から遺伝的祖先系統構成要素を獲得したかもしれません。したがって、中程度の新石器時代農耕民関連遺伝的構成要素の観察は、イングランド南西部における局所的混合の判断には使用できません。先行研究[18、21、23]と一致して本論文では、紀元前2550年頃以降の全個体における主要な祖先系統構成要素は、5000年前頃にヨーロッパ中央部へと拡大し始めたポントス草原地帯に居住していた集団にたどる、と結論づけられます[59]。
●グロスターシャー県のセールズ・ロット長形墓における二次埋葬
セールズ・ロット長形墓におけるコッツウォルド=セバーン様式の女性1個体(lot001)の遺伝学的分析は、鐘形杯文化と関連する個体群と一致する遺伝的特性(およびmtHg-H6a1b)を明らかにしました[18、23、60]。その遺骸の放射性炭素年代測定は紀元前2622~紀元前2467年頃で、鐘形杯文化と関連する移民集団と関係している1個体のブリテン諸島における最古級の埋葬の一つとなります。「塚の中核の中心部へと彫り込まれた」と報告され、杯および同製品の破片が伴っていたこの個体は、一方でブリテン島における最初期の杯埋葬の一例を表しているかもしれません。しかし、別の可能性があり、それは、ヒト遺骸が長期間補完され、塚への最終的な埋葬の時期には、その遺体はともに安置された副葬よりかなり古いことです。この後者の可能性はドーセット州のカナダ・ファームで証明されており、円形墓の下の木棺の一次埋葬は、関連する副葬品よりかなり古いと論証されており、各遺骸は埋葬前に何世代にもわたって補完されていた、と示唆されます。興味深いことに、カナダ・ファームの遺骸の放射性炭素年代の範囲はセールズ・ロットとほぼ同じで、得られた2点の年代のうち一方は紀元前2620~紀元前2470年頃でした。
セールズ・ロットま埋葬の事例でこれらの可能性のうちどれが正しいのかに関わらず、この女性個体がブリテン島への第一世代の移民だった可能性は充分にあり、それは古代の長形墓の埋葬形式でこの個体の遺骸が特別に扱われたことを説明できるかもしれません。この明らかに尊重された個体が女性だった事実は、男性が移住して「結婚」したか、少なくとも在来女性と子供を儲けたのではなく、初期の金属器使用社会における女性の地位、および女性がどの程度活発に移住に関わっていたのかの両方について、問題を提起します。
●ドーセット州のモンクトン・アップ・ウィンボーンにおける家族埋葬の1500年後の再利用
モンクトン・アップ・ウィンボーン中期新石器時代遺跡の考古学的報告では、大きく平底の中心部の特徴が指摘されており、幅は約10m、深さは約1.5mで、直径約35mに並ぶ14基の広く間隔を摂った長円形の土坑によって囲まれています。中心部の遺構の掘削は、白亜層における自然な水平節理面で意図的に停止されており、ひじょうに平坦な底面が形成されました。この底面は、深さ約7mの先細の坑と、本論文で考察された4ヶ所の埋葬を含む長円形の墓によって、後に切り離されました。埋葬後に、この墓は白亜の破片で丁寧に埋め戻され、徹底的に突き固められました。
単一の長円形墓から、埋葬遺構の建造と同時代の4個体の遺骸が発掘されました。これらの個体(muw001、muw002、muw003、muw004)間の密接な遺伝的関係の調査によって、男性2個体と女性2個体の間の1親等の親族関係が見つかり、(両親が同じ)全キョウダイと一致する2組(muw001とmuw002、muw001とmuw004)が含まれます。
この4個体すべてのmtHgは、鐘形杯文化の到来と関連する遺伝的置換の前にブリテン島で一般的だった[11、18、23]、K1a系統内に属します。これらの観察に基づき、放射性炭素年代の重複(紀元前3364~紀元前3093年頃)と合わせると、2組の関係の配置で最も節約的なのは、4個体すべてが全キョウダイか、成人の母親(年齢は30~45歳)と3人の子供(年齢はそれぞれ5歳と9歳と10歳程度)です。骨学的評価は、成人女性1個体と亜成体3個体を特定しました。埋葬が建造された遺構内に安置され、その後で覆われたことを考えると、モンクトン・アップ・ウィンボーンが単に家族埋葬として機能したのか、あるいは新石器時代ブリテン島の社会的動態内でより広範な重要性を有していたのかどうかは、依然として不明です。
注目すべきことに、新石器時代の親族集団の埋葬から1500年以上後に、同じ埋葬遺構が親族関係にない男性(muw005、紀元前1519~紀元前1321年頃)のために再利用され、muw005の遺伝的特性はこの間に典型的で、鐘形杯文化関連祖先系統と一致します(図2)。muw005は以前の中央部の切断内の中心に安置され、小さな燧石製の塚によって覆われており、意図的なその後の再利用が示唆されます。この段階までに、遺構は景観の中で水を湛える窪地として存続していたかもしれず、稀な大まかには同時代の窪塚が同じ土地で発掘されました。したがって、新石器時代の家族埋葬の1500年以上後に、異なる人口集団および文化的背景の男性1個体が、モンクトン・アップ・ウィンボーンで埋葬されました。
●グロスターシャー県の姉妹長形墓における再利用
姉妹長形墓では、再利用の同様のパターンが観察されました。姉妹長形墓では、男性3個体の遺骸(紀元前3782~紀元前3643年頃のslb001、紀元前3888~紀元前3647年頃のslb003、紀元前3697~紀元前3527年頃のslb004)が、塚の東端内に構築された石棺で、混在する関節の外れた遺骸群の中に堆積しており、複数段階での埋葬慣行の複雑なパターンの結果である可能性が高そうです。その2000年後(紀元前1534~紀元前1436年頃)に、若い成人女性1個体(slb006)が、石塚の頂部に造られた窪み状の墓に埋葬されました。それ以前の被葬者が同時代の新石器時代個体群に典型的な遺伝的祖先系統を示したのに対して、その後の個体群は鐘形杯文化と関連する期間の他の個体群と類似した遺伝的構成を示しました(図2)。
●まとめ
古代の墓のその後の埋葬慣行への利用および取り込みは以前に指摘されていましたが、この慣行の範囲がどのくらい広がっていたのかは、依然として不明です。本論文では特定された3事例では、青銅器時代個体群が、元々は遺伝的に異なる集団によって新石器時代に建造された埋葬地に葬られていました。比較データは、新石器時代(紀元前5500~紀元前2550年頃)と銅器時代および青銅器時代(紀元前2550~紀元前800年頃)の両方と直接的に放射性炭素年代測定された個体群が見つかった、ブリテン諸島の5ヶ所の遺跡をさらに明らかにしており、以前の埋葬地のその後の再利用は本論文で報告された遺跡群に限られていなかった、と示唆されます。
埋葬の利用における長期間の空白後に、これらの埋葬地が再び利用されたことから、すでに古代の埋葬遺構がその殿集団にとって社会的および象徴的意義を保持しており、その後の集団が自身をより古い景観内に定着させるか、想像上の祖先との関係を想起したかもしれない、と示唆されます。比較対象として利用可能な直接的に年代測定された個体と埋葬遺跡の数が限られていることを考えると、この解釈には依然として慎重であるべきです。
本論文の調査結果は、標本抽出と保存状態の偏りにも影響を受けているかもしれません。異なる遺伝的特性の鐘形杯文化関連個体群は、その埋葬が考古学的により可視化されているか、社会的に際立っていた場合、過大評価されているかもしれません。逆に、それ以前の新石器時代人口集団からのより大きな連続性の個体群は、その埋葬がさほど目立たなかったか、まだ発見されていないか、考古学的に可視的な埋葬状況で安置されなかったなにば、遺伝学的に過小評価されたままかもしれません。
それにも関わらず、そうした標本抽出の偏りが存在するとしても、重要な観察は依然として影響を受けておらず、本論文で調査対象の再利用された新石器時代の埋葬遺構には、祖先系統が元々の建造者と大きく異なる、1000年以上後に埋葬された個体群が含まれています。ブリテン島の他地域の現時点データも、草原地帯関連祖先系統を欠いている集団のかなり長期の存続の明確な証拠を提供していません[18、21、23]。
より広く見ると、新石器時代の巨石埋葬遺構の再利用はヨーロッパ大陸部全域で報告されており[20、30~32]、各地の同様の事例が局所的連続性か人口置換かより複雑な形態の相互作用を反映しているのかどうか、との問題を提起しています。埋葬遺構の再利用における性別や区よりの可能性も依然として未解明で、それは、セールズ・ロットと姉妹長形墓とモンクトン・アップ・ウィンボーンにおける二次埋葬が、成人女性2個体と男性1個体で較正されているからです。しかし、確実な結論を導くには、標本規模が小さすぎます。
遺伝学的および考古学的証拠の統合によって、本論文は個々の墓およびより広範な地域的景観にわたって、イングランド南西部における大きな人口統計学的変化を追跡します。後の共同体による以前の埋葬遺構のさいりようは考古学的に認識されてきましたが、これら後の個体群が元々の利用者の子孫だったのか、あるいは新たに到来した集団の構成員だったのかは、依然として議論になっています。本論文は、この問題が遺跡単位および地域的規模の両方で直接的に検証できることを示します。
ブリテン島南西部では祖先系統における顕著な変化が場所の利用と意味における連続性を伴っており、最初の農耕民によって作られた景観が、元々の共同体を超えて、社会的生命を獲得し、その共同体の消滅後に長く存続した、と示唆されます。
参考文献:
Vuković N. et al.(2026): Diachronic reuse of Neolithic burial monuments by Bronze Age newcomers in Southwestern Britain. Scientific Reports, 16, 26819.
https://doi.org/10.1038/s41598-026-66094-z
[5]Lazaridis I. et al.(2014): Ancient human genomes suggest three ancestral populations for present-day Europeans. Nature, 513, 7518, 409–413.
https://doi.org/10.1038/nature13673
関連記事
[11]Sánchez-Quinto F. et al.(2019): Megalithic tombs in western and northern Neolithic Europe were linked to a kindred society. PNAS, 116, 19, 9469–9474.
https://doi.org/10.1073/pnas.1818037116
関連記事
[15]Fowler C. et al.(2022): A high-resolution picture of kinship practices in an Early Neolithic tomb. Nature, 601, 7894, 584–587.
https://doi.org/10.1038/s41586-021-04241-4
関連記事
[17]Brace S. et al.(2019): Ancient genomes indicate population replacement in Early Neolithic Britain. Nature Ecology & Evolution, 3, 5, 765–771.
https://doi.org/10.1038/s41559-019-0871-9
関連記事
[18]Patterson N. et al.(2022): Large-scale migration into Britain during the Middle to Late Bronze Age. Nature, 601, 7894, 588–594.
https://doi.org/10.1038/s41586-021-04287-4
関連記事
[19]Haak W. et al.(2015): Massive migration from the steppe was a source for Indo-European languages in Europe. Nature, 522, 7555, 207–211.
https://doi.org/10.1038/nature14317
関連記事
[20]Allentoft ME. et al.(2015): Population genomics of Bronze Age Eurasia. Nature, 522, 7555, 167–172.
https://doi.org/10.1038/nature14507
関連記事
[21]Allentoft ME. et al.(2024): Population genomics of post-glacial western Eurasia. Nature, 625, 7994, 301–311.
https://doi.org/10.1038/s41586-023-06865-0
関連記事
[22]Narasimhan VM. et al.(2019): The formation of human populations in South and Central Asia. Science, 365, 6457, eaat7487.
https://doi.org/10.1126/science.aat7487
関連記事
[23]Olalde I. et al.(2018): The Beaker phenomenon and the genomic transformation of northwest Europe. Nature, 555, 7695, 190–196.
https://doi.org/10.1038/nature25738
関連記事
[30]Malmström H. et al.(2019): The genomic ancestry of the Scandinavian Battle Axe Culture people and their relation to the broader Corded Ware horizon. Proceedings of the Royal Society B, 286, 1912, 20191528.
https://doi.org/10.1098/rspb.2019.1528
関連記事
[31]Seersholm FV. et al.(2024): Repeated plague infections across six generations of Neolithic Farmers. Nature, 632, 8023, 114–121.
https://doi.org/10.1038/s41586-024-07651-2
関連記事
[32]Allentoft ME. et al.(2024): 100 ancient genomes show repeated population turnovers in Neolithic Denmark. Nature, 625, 7994, 329–337.
https://doi.org/10.1038/s41586-023-06862-3
関連記事
[34]Günther T, Malmström H, Svensson EM, Omrak A, Sánchez-Quinto F, Kılınç GM, et al. (2018) Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation. PLoS Biol 16(1): e2003703.
http://dx.doi.org/10.1371/journal.pbio.2003703
関連記事
[36]Günther T. et al.(2015): Ancient genomes link early farmers from Atapuerca in Spain to modern-day Basques. PNAS, 112, 38, 11917–11922.
https://doi.org/10.1073/pnas.1509851112
関連記事
[37]Mallick S. et al.(2024): The Allen Ancient DNA Resource (AADR) a curated compendium of ancient human genomes. Scientific Data, 11, 182.
https://doi.org/10.1038/s41597-024-03031-7
関連記事
[38]Bergström A. et al.(2020): Insights into human genetic variation and population history from 929 diverse genomes. Science, 367, 6484, eaay5012.
https://doi.org/10.1126/science.aay5012
関連記事
[39]Cassidy LM. et al.(2020): A dynastic elite in monumental Neolithic society. Nature, 582, 7812, 384–388.
https://doi.org/10.1038/s41586-020-2378-6
関連記事
[40]Fu Q. et al.(2016): The genetic history of Ice Age Europe. Nature, 534, 7606, 200–205.
https://doi.org/10.1038/nature17993
関連記事
[41]Mathieson I. et al.(2015): Genome-wide patterns of selection in 230 ancient Eurasians. Nature, 528, 7583, 499–503.
https://doi.org/10.1038/nature16152
関連記事
[42]Olalde I. et al.(2019): The genomic history of the Iberian Peninsula over the past 8000 years. Science, 363, 6432, 1230-1234.
https://doi.org/10.1126/science.aav4040
関連記事
[43]Antonio ML. et al.(2019): Ancient Rome: A genetic crossroads of Europe and the Mediterranean. Science, 366, 6466, 708–714.
https://doi.org/10.1126/science.aay6826
関連記事
[44]Brunel S. et al.(2020): Ancient genomes from present-day France unveil 7,000 years of its demographic history. PNAS, 117, 23, 12791–12798.
https://doi.org/10.1073/pnas.1918034117
関連記事
[45]Fernandes DM. et al.(2020): The spread of steppe and Iranian-related ancestry in the islands of the western Mediterranean. Nature Ecology & Evolution, 4, 3, 334–345.
https://doi.org/10.1038/s41559-020-1102-0
関連記事
[47]Jones ER. et al.(2015): Upper Palaeolithic genomes reveal deep roots of modern Eurasians. Nature Communications, 6, 8912.
https://doi.org/10.1038/ncomms9912
関連記事
[48]Mittnik A. et al.(2019):Kinship-based social inequality in Bronze Age Europe. Science, 366, 6466, 731–734.
https://doi.org/10.1126/science.aax6219
関連記事
[49]Rivollat M. et al.(2020): Ancient genome-wide DNA from France highlights the complexity of interactions between Mesolithic hunter-gatherers and Neolithic farmers. Science Advances, 6, 22, eaaz5344.
https://doi.org/10.1126/sciadv.aaz5344
関連記事
[50]Mallick S. et al.(2016): The Simons Genome Diversity Project: 300 genomes from 142 diverse populations. Nature, 538, 7624, 201–206.
https://doi.org/10.1038/nature18964
関連記事
[52]Mathieson I. et al.(2018): The genomic history of southeastern Europe. Nature, 555, 7695, 197–203.
https://doi.org/10.1038/nature25778
関連記事
[59]Saag L. et al.(2021): Genetic ancestry changes in Stone to Bronze Age transition in the East European plain. Science Advances, 7, 4, eabd6535.
https://doi.org/10.1126/sciadv.abd6535
関連記事
[60]Martiniano R. et al.(2016): Genomic signals of migration and continuity in Britain before the Anglo-Saxons. Nature Communications, 7, 10326.
https://doi.org/10.1038/ncomms10326
関連記事

この記事へのコメント