ゴットランド島の新石器時代個体のゲノム
ゴットランド島で発見された新石器時代個体のゲノムデータを報告した研究(Fraser et al., 2026)が公表されました。[]は本論文の参考文献の番号で、当ブログで過去に取り上げた研究のみを掲載しています。なお、以下の年代は基本的に較正されています。ゴットランド島では、紀元前3300~紀元前2800年頃に農耕民と狩猟採集民が共存しており、それぞれの遺伝的祖先系統(祖先系譜、祖先成分、祖先構成、ancestry)は、ほぼヨーロッパ新石器時代農耕民およびヨーロッパ中石器時代狩猟採集民と一致します。本論文は、ゴットランド島の支石墓(ドルメン)などで発見された新石器時代の人類遺骸について、ゲノムの再解析結果を報告し、新石器時代のゴットランド島の人口史を検証しています。その結果、農耕民と狩猟採集民との間で近い過去に遺伝子流動が起きていたかもしれないものの、その遺伝子流動のほとんどはゴットランド島での共存以前に起きていた、と推測されました。また、新石器時代のゴットランド島ではペスト感染が見られることも明らかになりました。
以下の略称は、DNA(deoxyribonucleic acid、デオキシリボ核酸)、mtDNA(mitochondrial DNA、ミトコンドリアDNA)、mtHg(mtDNA haplogroup、ミトコンドリアDNAハプログループ)、YHg(Y-chromosome DNA haplogroup、Y染色体DNAハプログループ)、PCA(principal component analysis、主成分分析)、cM(centimorgan、センチモルガン)、ROH(runs of homozygosity、同型接合連続領域)、IBD(identity-by-descent、同祖対立遺伝子)、Nₑ(有効人口規模)、Sr(strontium、ストロンチウム)、UDG(uracil-DNA-glycosylase、ウラシルDNAグリコシラーゼ)、Mb(megabase、百万塩基対)、DATES(Distribution of Ancestry Tracts of Evolutionary Signals、進化兆候の祖先系統区域の分布)、PSMC(pairwise sequentially Markovian coalescent、対での逐次マルコフ合着)、CI(confidence interval、信頼区間)、SNV(Single Nucleotide Variant、一塩基多様体)、HG(hunter gatherer、狩猟採集民)、NF(Neolithic farmer、新石器時代農耕民)、ENF(Early Neolithic farmer、前期新石器時代農耕民)、EHG(HG-groups exhibiting an eastern genetic ancestry、東方遺伝的祖先系統を示す狩猟採集民集団)、WHG(western HG、西方狩猟採集民)、SHG(Scandinavian HG-group、スカンジナビア半島狩猟採集民集団)、ANE(Ancestral North Eurasian、古代北ユーラシア人)、SE(Sweden、スウェーデン)、DE(Deutschland、ドイツ)です。
以下の時代区分の略称は、N(Neolithic、新石器時代)、EN(Early Neolithic、前期新石器時代)、MN(Middle Neolithic、中期新石器時代)、LN(Late Neolithic、後期新石器時代)、LNBA(Late Neolithic to Bronze Age、後期旧石器時代~青銅器時代)、BA(Bronze Age、青銅器時代)です。
本論文で取り上げられる主要な病原体は、エルシニア属の、ペスト菌(Yersinia pestis)、エルシニア感染症(yersiniosis)の原因となるエルシニア・エンテロコリチカ(Yersinia enterocolitica)、仮性結核菌(Yersinia pseudotuberculosis)です。
本論文で取り上げられる主要な文化は、漏斗状ビーカー(漏斗形杯)文化(Funnelbeaker Culture、Trichterbecherkultu、Trichterbecher、略してFBCもしくはTRB)、円洞尖底陶文化(Pitted Ware Culture、略してPWC)、縄目文土器文化(Corded Ware culture、略してCWC)、戦斧文化(Battle Axe Culture、略してBAC)、球状アンフォラ(両取って付き壺)文化(Globular Amphora Culture、略してGAC)、ズロタ(Zlota)文化、櫛目文土器(Combed Ware)文化、線形陶器(Linear Pottery、Linearbandkeramik、略してLBK)文化です。
本論文で取り上げられる主要なスウェーデンの地域と遺跡は、ゴットランド島のアンサーヴ(Ansarve、略してans)とアジュヴィーデ(Ajvide、略してajv)とヘモール(Hemmor、略してhem)とヴェーステルブイェルス(Västerbjers、略してvbj)、ストラ・カールソー(Stora Karlsö)島のストラ・フェルヴァー(Stora Förvar、略してsf)洞窟、ファルビグデン(Falbygden)、ムータラ(Motala)、フレールセガーデン(Frälsegården)のゲクヘム(Gökhem)教区、ヴェステルイェートランド(Västergötland)のレッスベルガ(Rössberga)、アルヴァストラ杭上住居(Alvastra Pile dwelling)です。
本論文で取り上げられる主要なスウェーデン以外の地域と遺跡は、フィンランドのファゲルヴィーク(Fagervik)、ラトビアのリニュカルンス(Riņņukalns)、リトアニアのギヴァカライ(Gyvakarai)、エストニアのクニラ(Kunila)、ドイツのヴァールブルク(Warburg)とブレッターヘーレ(Blätterhöhle)とタンガーミュンデ(Tangermünde)とゾルズム(Sorsum)とバールベルゲ(Baalberge)とシュトゥットガルト(Stuttgart)、ルクセンブルクのロシュブール(Loschbour)です。
●要約
二つの考古学的文化複合体である新石器時代のFBCとPWCは、紀元前3300~紀元前2800年頃の間の約500年間共存していました。FBC農耕民とPWC採食民の祖先系統はそれぞれ、ほぼヨーロッパ新石器時代農耕民およびヨーロッパ中石器時代採食民と一致しますが、ゴットランド島の集団間の直接的な相互作用は解明されていません。本論文は、アンサーヴのFBC支石墓から得られた、中期新石器時代の高網羅率のゲノム1点と後期新石器時代の低網羅率のゲノム1点を提示します。本論文は、これら中期新石器時代農耕民(6個体)と採食民(19個体)と後期新石器時代1個体における、祖先系統と混合と病原体を調べます。農耕民と採食民との間で近い過去の遺伝子流動が起きていたかもしれないものの、ほとんどの遺伝子流動はゴットランド島での共存の前に起きていた、と分かりました。3文化集団における異なるペスト菌株の証拠も見つかり、ペストが異なる生計戦略の集団あいだで広がっていた、と示されます。
●研究史
考古ゲノミクスの急速な発達のため今や、ヨーロッパ北部におけるゲノム差異の現在のパターンの一部は、いくつかの大きな先史時代の人口統計学的事象によって形成された、と分かっています。これらには、ヨーロッパ大陸における北方への先駆的な狩猟採集民集団の旧石器時代および中石器時代の表記後の拡散や、前期新石器時代農耕民(ENF)集団の拡大期における中石器時代狩猟採集民(HG)の置換および同化や、それに続く、ヨーロッパへといわゆる草原地帯関連祖先系統の遺伝的構成要素をもたらした、縄目文土器複合体(CWC)の集団の拡大[3、4]が含まれます。
ヨーロッパ新石器時代における移住の全体的なパターンは知られていますが、ヨーロッパの多くの地域における人口統計学的および社会的発展は充分には調べられてこなかったので、採食民と農耕民との間の相互作用の異なる独特なパターンを示すかもしれません。ゴットランド島(図1)はこの点で特異であり、バルト海の中央に位置するものの、スカンジナビア半島南部で見られる一般的な新石器時代の発展を反映している[5~8]だけではなく、局所的な発展も示しています[10、14]。以下は本論文の図1です。
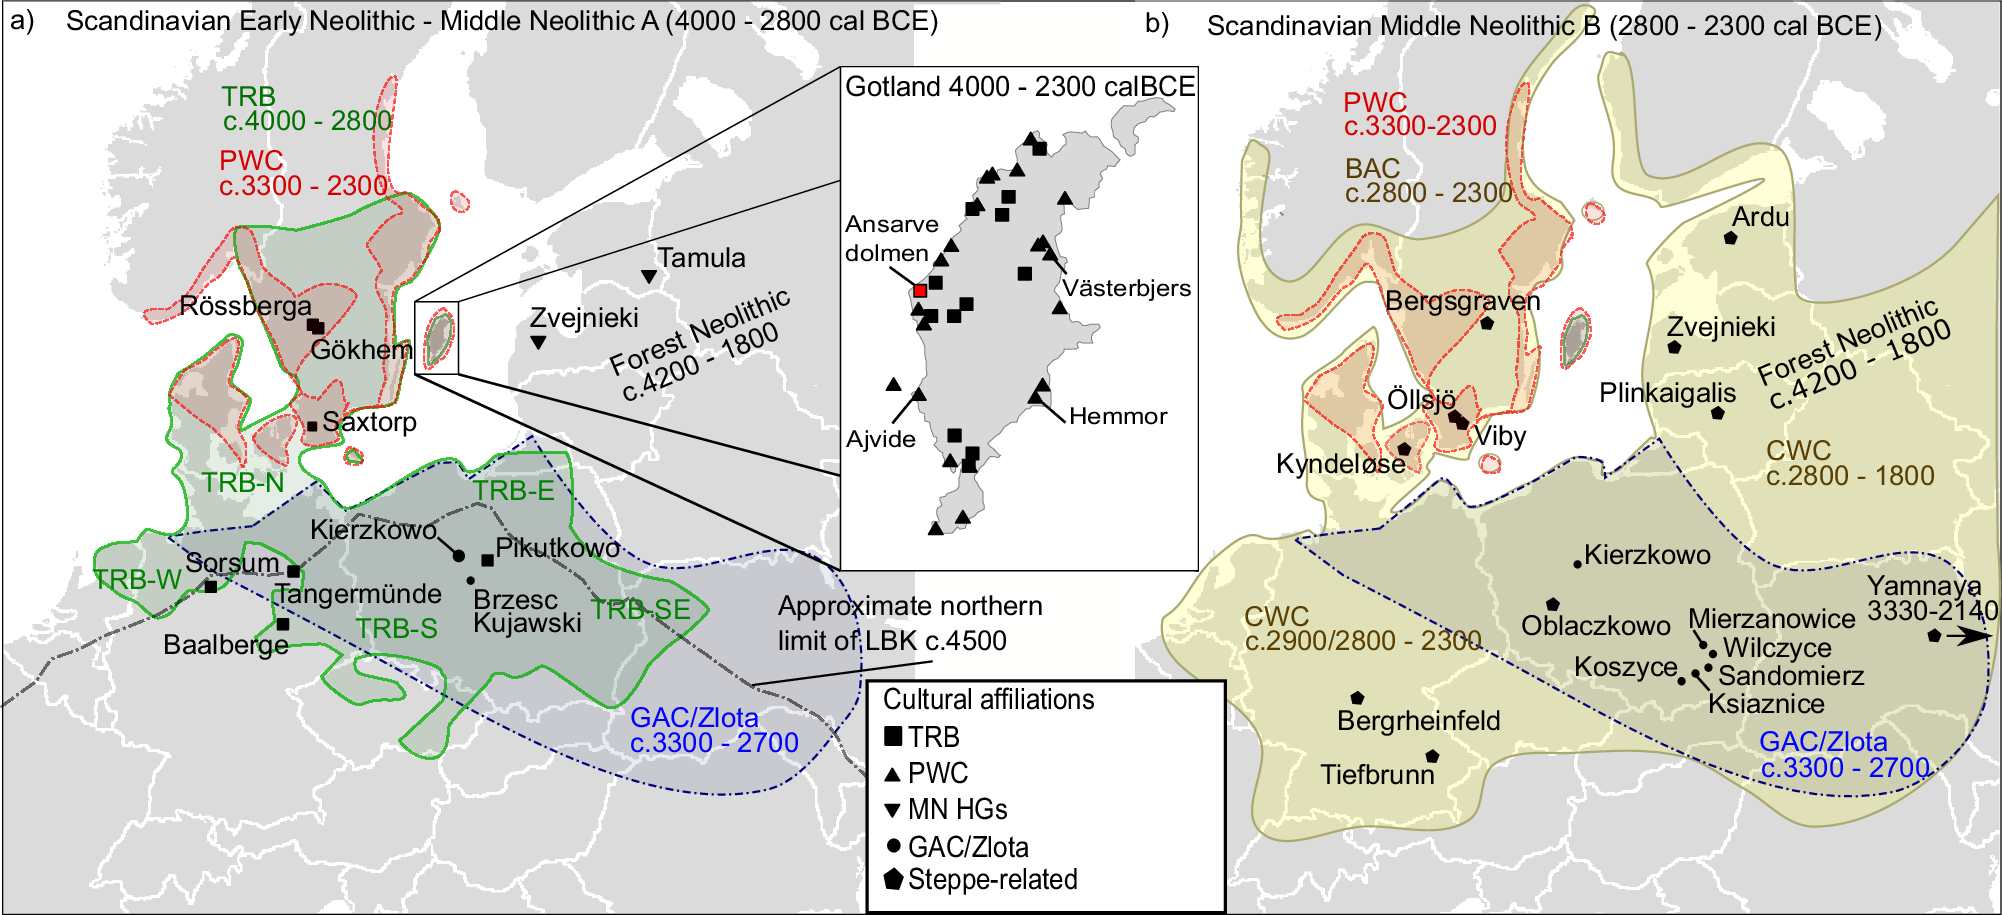
スカンジナビア半島に当初定住したのは南方からの中石器時代HG集団で、この集団はWHGの遺伝的祖先系統を示していましたが[8]、EHGを示すHG集団による北東からの遺伝的祖先系統も示しており、WHGとEHGのさまざまな程度の混合がスカンジナビア半島HG集団(SHG)に生じ、それはゴットランド島でも見られます[14]。スカンジナビア半島南部(ゴットランド島を含みます)の新石器化は、漏斗形杯文化複合体(TRB、紀元前4000~紀元前2800年頃)と関連しています。この移行は、おもにENFの遺伝的祖先系統を示すものの、ある程度のENFとHGの混合も示す集団の出現と関連しています[5、7、8、23、24]。最近、現在のデンマークとスウェーデンとポーランドのTRB関連個体群は遺伝的な下部クラスタ(まとまり)を形成する、と示されており、スカンジナビア半島TRB集団の供給源人口集団のヨーロッパ北東部起源が示唆されています[8]。紀元前3600年頃、新たな巨石埋葬伝統が支石墓(ドルメン)および羨道墓の形態でTRB複合体に現れ、広範なTRB圏内の継続的な長距離の接触が示唆されます(図1a)。
スカンジナビア半島TRB集団における採食民との混合構成要素はWHG関連で、混合はおもにスカンジナビア半島に到達する前に起きていた、と示唆されましたが[8]、SHG関連集団との局所的混合も示唆されました[5]。しかし、新石器時代の採食民集団もスカンジナビア半島の大半に存在しており、つまり、海洋民のPWC(紀元前3300~紀元前2300年頃)で、PWC集団は局所的なTRB集団との接触を示しており、これら同時代の集団間の直接的な相互作用があったかもしれません。PWCは現在のデンマーク北東部の沿岸部地域から最大でスウェーデン中央部とノルウェー南部とゴットランド島とバルト海の西方諸島に沿って繁栄しました。PWCは広範に分布しましたが、その遺伝学的分析は以前には、ゴットランド島のPWC関連個体群でのみ行なわれており、おもにSHG祖先系統で、わずかな程度のENFとの混合が伴う、と明らかになりました[10]。現在のデンマークでは、ゴットランド島PWCと同年代の2個体はSHG祖先系統しか示さない(ENFとの混合を示しません)、と分かり[8]、人口史における違いが示唆されます。
PWC関連のヒト遺骸は、スカンジナビア半島本土の考古学的記録では稀です。しかし、TRBとPWCの両方と関連する個体の遺骸は、ゴットランド島では考古学的記録に見られます。最近まで、中期新石器時代のゴットランド島には、農耕と畜産を取り入れた季節的な生計慣行を伴う1集団が居住していた、と示唆されていました。しかし、考古遺伝学的研究では、異なる生計経済および文化的慣行と関連する考古学的な2集団は異なる遺伝的変異性を、したがって異なる人口史と祖先系統を示している、と分かってきました[24]。この2集団はゴットランド島で500年以上共存しましたが、その社会的接触、したがってゴットランド島におけるTRB集団とPWC集団との間の遺伝子流動の可能性は、充分には調べられてきませんでした。
TRB土器と家畜化された動物遺骸を伴う少なくとも10ヶ所の遺跡がゴットランド島では発見されてきましたが、これまでに唯一確認されている支石墓TRB埋葬は、アンサーヴの支石墓に位置しています(図1)。アンサーヴの支石墓に埋葬された個体群に関する以前の考古遺伝学的分析では、男性系統における経時的な連続性や、男性2個体間の2親等の親族関係が明らかになり、埋葬を使用したのは父方居住社会だったことが示唆されています[24]。これらの結果は、スウェーデン本土の同時代のTRBに関する最近の調査結果と一致し、ゴットランド島における局所的なTRB集団について、アンサーヴ遺跡の埋葬の特異性が強調されています。
ゴットランド島の旧海岸沿いでは、少なくとも20ヶ所の異なるPWC集落遺跡が報告されており(図1)、そのうちいくつかには、多くの平地墓を伴う埋葬地が含まれています。新たな遺跡が依然として発見され続ており、PWCが多く存在したことを示唆しています。したがって、TRBおよびPWC複合体はスカンジナビア半島中期新石器時代(MN)においてゴットランド島で共存しており、その期間は紀元前3300~紀元前2800年頃の間ですが、紀元前2700年頃以後には、PWC複合体のみが存続しました。
紀元前2800年頃、考古学的記録は現在のスウェーデンが変わり、BAC/CWC複合体が出現します(図1b)。考古遺伝学的研究では、この移行は草原地帯関連祖先系統構成要素を伴うヒトの拡散と一致する、と示されています。BAC/CWC期は、ゴットランド島のTRB末期と重なっています。BACの人工遺物がたまにゴットランドで発見され、一部の人工遺物様式はいくつかのPWC埋葬でさえ発見されてきましたが、これまで、典型的なBAC埋葬もしくは集落は、見つかっていません。PWC埋葬の個体群では、BACの文化的影響がある埋葬の個体群でさえ、草原地帯関連祖先系統が検出されていません[10]。
興味深いことに、この地域においてヒトの移動性と相互作用と文化的および社会的変容が高かったこの期間に、病原体、より具体的にはペスト菌が広範に拡大下ようで、いくつかのペスト菌株が最近報告されました。これまでで最古級の基底部系統がラトビアのリニュカルンスの狩猟漁撈採集民(紀元前3350~紀元前3100年頃)で見つかり、これはバルト海地域におけるCWCの出現前となります。しかし、ペストの繰り返しの発生がファルビグデンのTRB共同体やスカンジナビア半島南部全域のいくつかの他の遺跡で発見されてきており、いわゆる新石器時代のペストはこれらの地域で5000年前頃には一般的だった、と示されます[7、56]。追加の系統がドイツ西部中央のヴァールブルクのネクロポリス(大規模共同墓地)の同時代の2個体(紀元前3340~紀元前2900年頃)で発見されており、そのうち1系統はファルビグデンのペスト単系統群(クレード)内に位置するようです[57]。数世紀後、CWCの移住と同時に、いわゆるLNBAペスト系統の追加の下部がバルト海地域に到達し、リトアニアのギヴァカライ(紀元前2621~紀元前2472年頃)とエストニアのクニラ(紀元前2574~紀元前2340年頃)の2個体で見つかり、両者は草原地帯関連祖先系統を示しています。したがって、この病原体はおそらく新石器時代の衰退期に重要な役割を果たし[7、56]、ゴットランドにおける存在の可能性は、スカンジナビア半島新石器時代におけるゴットランド島の人口統計学的発展に新たな情報を追加します。
この研究では、アンサーヴの支石墓から発見された6個体[24]が、先行研究[10]で提示されたゴットランド島のPWC遺跡(アジュヴィーデ、ヘモール、ヴェーステルブイェルス)の19個体とともに再分析され、TRB複合体とPWC複合体が共存していた頃のゴットランド島における人口統計学的発展が解明されました。アンサーヴ遺跡個体のうち1個体で新たな高網羅率のゲノムデータ、支石墓に埋葬されたその後の年代の1個体で新たな低網羅率のゲノムデータが提示されます。最後に、ゴットランド島の個体群におけるペスト菌の古代株の存在の可能性が調べられました。
●用語
本論文では集団遺伝学的分析において、「前期~中期」新石器時代の背景のすべての考古学的個体/集団を指す場合、「新石器時代農耕民(NF)」との総称を使い、それは、これらの個体が大まかには同じENFの人口史を共有しているからです。分類表示に関するより多くの情報については、表1と補足データ1と補足第4.1項を参照してください。
●ゲノム配列決定と人口構造
先行研究[24]で提示された学童期(6~7歳から12~13歳頃)の男性個体SE_TRB_ans017(紀元前3330~紀元前2930年頃)について、27.42倍のUDG処理ゲノムが生成されました。同様に、先行研究で提示されたその後の埋葬使用から発見された成人個体SE_LN_ans010(紀元前2030~紀元前1890年頃)について、0.06倍のゲノム網羅率が得られ、この個体は本論文では男性と判断できました。配列データは古代DNAに特徴的な性質を示し、それは、短い断片長、0.15~0.58の割合の断片末端におけるシトシンの脱アミノ化で、汚染水準は低いと分かりました。片親性遺伝標識(母系のミトコンドリアと父系のY染色体)は、SE_TRB_ans017ではmtHg-HV0aとYHg-I2a1a2a1a1(S2703)、SE_LN_ans010ではmtHg-U5b2a1a1で、以前に提示された結果[24]と一致し、SE_LN_ans010のYHgはI2a2a(PF3918)と判断できました(表1)。
アンサーヴ遺跡個体とPWC個体群が、中石器時代と前期青銅器時代の間の古代ゲノム規模データのある刊行されている207個体とともに、ヒト起源第2版データ[60]のヨーロッパと近東とコーカサスの67人口集団の現代人991個体を用いた最初の2主成分に投影されました。具体的には、ゴットランド島の個体群が同時代のヨーロッパ中央部の文化集団の個体群と比較され、スカンジナビア半島TRBはPCA空間ではポーランドのGACおよびズロタ文化の背景の個体群とクラスタ化し(まとまり)、同様の水準のHGとの混合を共有している、と分かりました(図2b)。一部の同時代のNF個体(たとえば、ブレッターヘーレやタンガーミュンデやゾルズム)はHGとの混合割合が増加しており、スカンジナビアNFクラスタ(まとまり)とWHGとの間で勾配を形成します。以前に示されたように[10]、PWC個体群はNFの方向においてわずかにSHGから離れた別のクラスタを形成しており、それはNFとの低水準の混合によって引き起こされています。さらに、アンサーヴの支石墓のLNの男性1個体(SE_LN_ans010、紀元前2030~紀元前1890年頃)は、草原地帯関連祖先系統を示すため他の個体とともに勾配に位置しており、この個体はこれまでにゴットランド島で見つかった、草原地帯関連祖先系統を有する最古級の個体となります。以下は本論文の図2です。

NFにおける遺伝的構造をさらに調べると、NF個体群は大まかには異なる地理的拡散の主要な3クラスタに分かれ、それは共有浮動f3統計に基づくと、(1)スカンジナビア半島クラスタ、(2)ポーランドクラスタ、(3)EN~MNヨーロッパ中央部およびアナトリア半島クラスタ(図3a)と観察されました。集団水準では、ポーランドとスカンジナビア半島のTRBのクラスタ化(まとまること)が確証されますが[62]、DE_TRB_バールベルゲ_QLB_CP個体とのつながりも見られます。個体水準では、より多くの遺伝的浮動が観察され、アンサーヴ個体におけるある程度の孤立が示唆され、これによって、アンサーヴ個体群はファルビグデン(ゲクヘムとレッスベルガ)のスカンジナビア半島本土のTRB背景とは異なることになります(図3a)。アンサーヴ個体と250基超の巨石埋葬があるファルビグデン地域のTRB個体群との間の文化は、その地域で見つかった多くの血縁関係によっても説明可能かもしれません。以下は本論文の図3です。

●中期新石器時代ゴットランド島における社会的構造および動態
先行研究は、ゴットランド島のTRBおよびPWC個体群における最大で2親等の密接な親族関係のつながりを論証しました[10、24]。本論文でも、年代的により古い女性2個体(ans003とans005)が他のアンサーヴ個体とよりも相互の方と多くの浮動を共有していた、と分かりました(f4統計)。最大で7親等の親族関係を検出できるancIBDが実行され、アンサーヴ遺跡における2親等の男性との関係[24]とは別に、上述の女性間で3親等の関係が見つかりました。しかし、その近縁性の性質を判断するには充分なデータがなく、両個体の網羅率は推奨される0.4倍の境界値を下回っていました(表1)。
PWCの3集団において親族関係が見つかり、SE_PWC_vbj001とSE_PWC_vbj008との間の2親等の近縁性が確認され、祖父母と孫の関係と予測され、SE_PWC_vbj006とSE_PWC_vbj013との間の別の3親等の関係(曾祖父母と曽孫)が見つかりました。これら3ヶ所の遺跡内および遺跡間両方で、2親等から3~4親等のいくつかの他の親族関係が見られ、これはゴットランド島のPWCの長い人口連続性および異なる遺跡間の接触も示唆しています。
異なる石器時代集団の過去の人口規模を理解するために、いくつかの異なる手法が適用されました。SE_TRB_ans017とSHG_ゴットランド_sf12とWHG_ロシュブールとDE_LBK_シュトゥットガルトの高網羅率のゲノムのPSMC分析から、アンサーヴ遺跡のTRB集団はSHGおよびWHGと比較してNₑはより大きいものの、ENFと比較するとより小さい、と分かりました。これらの観察は条件付ヌクレオチド多様性推定[5]および補完データ(網羅率1倍超のゲノム)のROH分析[65]ともほぼ一致しており、ROH分析では、NF個体群は大まかには、長い(1.6Mb超)ROH上のいくらかの僅かな差異に沿って、同じ割合の短いROH断片(1.6Mb未満)を示しました。
一方で、中石器時代および新石器時代のHGは、NF集団よりも高い割合の長短のROH断片を示し、HG人口集団がより小さな集団で生きていたことを示唆しています。PWC個体群は、おそらくはNFからの遺伝子流動の結果として、中石器時代HGよりもこれらの断片の割合が低くなっています。NFと比較してのゴットランド島のPWC個体群におけるより小さなNₑは、同型接合性の断片(4cM超)とNₑの分析からさらに確証されました。
しかし、個体SE_TRB_ans017は染色体のほとんどにも存在していたより高い割合の長いROH断片を示しており、これは近親交配を示唆し、この個体は密接な親族関係にある両親の子供でもあった、と予測されました[65、66]。この観察は、高網羅率のゲノムと以前に刊行された網羅率6.8倍のゲノム[24]の両方を用いた、SE_TRB_ans017の近交係数推定値(F=0.10)と一致します。
SE_TRB_ans017における近親交配の生物学的影響を評価するために、有害な多様体について高網羅率のゲノムが検査されました。SNPEffを用いて、6点の多様体が「影響度大」と分類されましたが、これらの多様体のほとんどは、以前には知られていなかった変異部位に生じていたか、異型接合として存在していたか、機能的影響が知られていないかのいずれかで、その生物学的影響の解釈を複雑にしています。
●混合パターン分析
アンサーヴ遺跡個体群はHGとのある程度の水準の遺伝子流動を、PWC個体群はNFとのある程度の遺伝子流動を示し、この2集団はゴットランド島で500年以上共存していたので、この混合がゴットランド島で共存期間に起きた可能性があるのかどうか、調べられました。NFはヨーロッパ大陸での拡大期にWHGと混合したことが、以前に示されました[4、5、68]。したがって、アンサーヴ遺跡個体群の祖先はスカンジナビア半島への到来前にWHGとの混合の証拠を示しました[8]。しかし、他の研究は、スカンジナビア半島NFとSHGとの間のその後の混合も提案しました[5]。
qpGraphを用いて、異なる想定がモデル化されました。アンサーヴ遺跡のTRB集団における経時的なHGとの混合を調べたいので、アンサーヴ遺跡の各個体について個体水準の分析が実行されましたが、PWC個体群は1集団として調べられました。まず、WHGとアナトリア_NとSHG_ムータラのアンサーヴ遺跡TRB個体群およびPWC集団への混合があるものの、これらの集団間の混合を伴わない想定が検証されました。アンサーヴ遺跡の6個体のうち4個体(ans005、ans008、ans017、ans016)はそのモデルと一致します。さらに、これらの結果から、アンサーヴ遺跡個体群は、農耕民/WHG混合祖先系統に加えて、SHG関連人口集団からの9~12%の間の遺伝子流動を示すことも示唆されます。興味深いことに、このSHGとの混合は、これらの個体の放射性炭素年代を考慮すると、経時的に増加したようです。アンサーヴ遺跡個体群(ans003とans014)は低い割合のSHGとの混合を示しましたが(それぞれ、7%超と2%)、モデルへの適合度は低くなりました。
次に、PWC集団がSHGとアンサーヴ遺跡TRB個体群との間の混合としてモデル化できるのかどうか、評価されました。このモデルは、アンサーヴ遺跡TRB個体群関連供給源とPWC集団の祖先との間の遺伝子流動(ゴットランド島もしくは大陸のどちらかで起きました)を示唆します。本論文の結果から、1集団としてのPWC個体群は、その祖先系統の31~36%が、農耕民祖先系統の代理として機能する可能性が高い、アンサーヴ遺跡TRB個体群的祖先系統に由来するとモデル化できる、と示唆されます。
次に、アンサーヴ_TRB(高網羅率のゲノムans017によって表されます)とWHG_ロシュブールとSHG_ゴットランド_SF12に加えてDE_LBK_シュトゥットガルトとの間のより密接な遺伝的類似性が調べられ、SE_TRB_ans017はWHG的な人口集団とよりもSHG的な人口集団の方と多くの新しい祖先系統を共有している、と分かりました。
これらの結果に基づいて、上述の高網羅率のゲノムが、「メタANE」や「メタWHG」や「メタEHG」や「fastsimcoal2.7を用いてのメタ新石器時代」[69]と分類表示される標本抽出されていないメタ個体群(アレルの交換といった、ある水準で相互作用をしている、空間的に分離している同種の個体群の集団)がモデル化され、アンサーヴ遺跡個体群の人口史が推定されました。4通りのモデルが検証され、それは、(1)アンサーヴ人口集団への混合の波はない、(2)LBK+アンサーヴ集団の祖先へのWHGの混合の波、(3)アンサーヴ集団へのSHGの混合の波、(4)LBK+アンサーヴ集団の祖先へのWHGの混合の波に加えて、アンサーヴ集団へのSHGの混合の波です。その結果、モデル(4)の可能性が最も高かった、と分かりました(図3c)。SE_TRB_ans017における狩猟採集民祖先系統の合計(SHG+WHG)は38%(95%CIで11.24~44.71%)となり、これはqpGraphから推測された推定値と一致します。
次に、スカンジナビア半島TRB個体群へのHGとの混合の時期がDATES[71]で調べられ、採食民とのこれらの遺伝子流動事象の大半は遠い祖先で起きており、スカンジナビア半島の新石器化に先行してヨーロッパ大陸でWHG関連人口集団からか、および/もしくはPWCの出現に先行するSHG関連人口集団とのスカンジナビア半島との混合のいずれかと示されます(図3b)。興味深いことに、最も多いSHG関連祖先系統を示すSE_TRB_ans016は、より近い過去の混合事象もしめしており、これはゴットランド島におけるPWC複合体の出現後です。さらに、PWC個体のほとんどで見られるNFとの混合事象は遠い祖先で起きており、それはスカンジナビア半島へのNFの拡散の後で、ゴットランド島におけるPWCの発展の前のことで、いくつかの個体(SE_PWC_ajv36、SE_PWC_ajv54、SE_PWC_vbj001、SE_PWC_vbj013、SE_PWC_vbj018)はより近い過去のNFとの混合を示し、これはゴットランド島で起きたかもしれません。
●アンサーヴ遺跡およびPWCの標本におけるペスト菌の検出
最後に、スカンジナビア半島とバルト海地域とヨーロッパ中央部における以前のペスト菌の報告を踏まえて、ペスト菌がゴットランド島のアンサーヴ遺跡およびPWC遺跡群に存在した可能性[5、10、24、68]が調べられました。
アンサーヴ遺跡の11個体およびPWCの21個体のライブラリ783点のうち、5個体(SE_TRB_ans003、SE_TRB_ans005、SE_TRB_ans007[24]、SE_PWC_ajv58、SE_LN_ans010)でペスト菌配列の存在の可能性の証拠が見つかりました。マッピング(多少の違いを許容しつつ、ゲノム配列内の類似性が高い処理を同定する情報処理)された読み取りの数が、堅牢な系統発生分析を可能とするにはあまりにも少なかったので、異なる戦略の組み合わせによって本論文の結果が証明され、それは、(1)エルシニア属の既知の全種の代表に対する競合的マッピング、(2)編集距離特性、(3)染色体とプラスミドにマッピングされた読み取りの数、(4)ペスト菌株間のSNVの分布です。
本論文の結果はすべての分析において、LNの1個体(ans010、紀元前2030~紀元前1890年頃)におけるペスト菌の存在を裏づけており、これは、最近の文献で定義された、LNBA系統に属する可能性が最も高そうな株です。この系統の構成員は、この標本の時間性から予測できます。この個体のより低い網羅率のデータで以前に検出されたエルシニア・エンテロコリチカの発見も確証され、これは両種【エルシニア・エンテロコリチカとペスト菌】の同時感染を示唆しているかもしれません。エルシニア・エンテロコリチカは致死的かもしれない感染性腸炎を引き起こし、これは一般的には感染した水と食料によって拡大し、一般的にはイノシシ科の生肉もしくは生焼けの肉を摂取することで感染します。それ以前の新石器時代のペスト菌株とエルシニア・エンテロコリチカの同時感染が、ファルビグデンのMNの1個体で以前に見つかりました[7]。以前に報告されたSE_PWC_ajv5873を含めて、本論文で分析された他のいくつかの個体でエルシニア・エンテロコリチカの証拠が見つかりましたが、これらの結果を確証するにはデータが少なすぎました。
同様に、ペスト菌の存在の証明は、他の4個体ではより困難でした。しかし、異なる証明分析によって提供される補完的証拠の組み合わせによって、アンサーヴ遺跡の埋葬の初期段階(ans003、紀元前3490~紀元前3110年頃)におけるペスト菌の存在を確認でき、これは、ペスト菌の典型的な3点のプラスミド(pMT1、pPCP1、pCD1)、密接に関連する祖先のエルシニア・エンテロコリチカとよりもペスト菌の方と近いの編集距離特性、通常はペスト菌の特徴であるいくつかのSNVの存在によって裏づけられます。観察されたSNVはペスト菌のほとんどの基底部株の一部との類似性を示唆していますが、どの株が最も近いのか、決定できませんでした。支石墓の他のMN2個体(ans005とans007)ではペスト菌の存在を明らかには確証できなかったので、これらの結果を完全に証明するには、より高度な配列決定の試みが必要でしょう。
しかし、ペスト菌は、通常はペスト菌に存在し、たとえば仮性結核菌には存在しない、いくつかのSNVによって証明されるように、アジュヴィーデのPWC遺跡のSE_PWC_ajv58(紀元前2880~紀元前2630年頃)には存在していた可能性が最も高い、と分かりました。さらに、最も基底部のRV2039株と、他のどの新石器時代およびLNBA株とよりも密接な類似性を示唆する、いくつかのSNVも特定され、この個体はバルト海地域においてHGに感染した株により近い株で感染した、と示唆されました。
●考察
本論文の分析から、ゴットランド島の最初の新石器時代農耕民(TRB)生活および社会的交流網、および同時代の(PWC複合体の)海洋HGへの独特な知見が得られました。これらの異なる考古学的集団は500年以上ゴットランド島で共存し、その人口統計学的背景や物質文化の表現や生計経済や生活様式は異なっていました。
TRB集団間の遺伝的類似性に関して、アンサーヴ遺跡個体群とスカンジナビア半島およびポーランドの他のTRB関連個体群[7、62]との間のつながりが確証されましたが、現在のドイツのTRB関連の1個体とのつながりも見つかり、TRB圏の集団間に共通の遺伝的起源が示唆されます。アンサーヴ遺跡の支石墓の存在から、ゴットランド島のTRB集団は、スカンジナビア半島およびヨーロッパ大陸に現れたのと同時に記念碑的埋葬を建てて、それはゴットランド島におけるTRB物質文化の最初の出現の500年以上後だったので、より大きなTRB複合体と接触していたに違いない、と確証されます。
アンサーヴ遺跡個体群は遺伝的には、他のTRB個体群および集団とよりも、相互の方と類似しているようで、これはゴットランド島における相対的な孤立に起因する可能性が高そうです。しかし、ゴットランド島全体の多くのTRB集落の存在とTRB関連の遺物の発見の多さから、より大きなTRB人口集団の存在があったに違いない、と示唆され、これはNₑの分析でも確証されます。アンサーヴ遺跡個集団がこのより大きな人口集団の適切な代表なのかどうか、依然として不明で、それは他のTRB関連埋葬がゴットランド島で発見されていないからです。
以前に示された男性の親族関係(ans014とans017)に加えて、アンサーヴ遺跡の埋葬の最古級の使用の女性2個体(ans003とans005)は3親等で親族関係にあった可能性が高いことも分かりました。これらの女性はおそらくイトコか、あるいは大オバとメイかもしれませんが、そのミトコンドリアハプロタイプに基づくと、厳格な母系親族関係は除外できます(表1)。興味深いことに、同時代の男性(ans008とans014)がYHgとmtHgの両系統を共有していても、密接な親族関係ではありません。しかし、埋葬には約30個体があり、少なくとも15個体は以前にMNと年代測定されていたので、スウェーデン本土の同時代の巨石埋葬で見られたように[7]、追加の親族関係があった可能性は高そうです。以前に示されたように[65、66]、SE_TRB_ans017はイトコ間の子供と予測され、近親交配の痕跡を示しました(F=0.10)。稀ですが、近親交配のいくつかの事例が他の新石器時代農耕民遺跡でも見つかってきました[7、65]。したがって、親族関係と密接な両親の近縁性から、アンサーヴ遺跡の支石墓は長期間継続した拡張家族の埋葬遺跡だった、と示唆されます。
PWC個体間で以前に報告された親族関係や、3ヶ所の遺跡(アジュヴィーデとヘモールとヴェーステルブイェルス)間の追加の親族関係が確証され、ゴットランド島の異なる地域の異なるPWC集団間の近い接触が示唆されます。ヘモール遺跡のより古い個体群では、アジュヴィーデおよびヴェーステルブイェルスと比較してわずかに高いNₑが観察され、これは最初の入植後のボトルネック(瓶首効果)とその後のPWC人口集団の孤立を示唆しているかもしれません。しかし、この瓶首効果はその後のPWC個体群における近親交配増加を示唆していません。
SHGからスカンジナビア半島TRBへの局所的な遺伝子流動はなかった、との以前の示唆[8]とは対照的に、アンサーヴ遺跡個体群におけるSHG関連の遺伝子流動の証拠が見つかりました。アンサーヴ遺跡個体群は、すでに混合していたNF/WHGに加えて、9~21%のSHG混合でモデル化できます。これらの遺伝子流動はおもにPWCの物質文化複合体の出現前に起きており(図3b)、スウェーデン本土もしくは恐らくゴットランド島のどちらかのSHG関連人口集団との混合で、それは、ゴットランド島には後期中石器時代物質文化の証拠がいくらかあるからです。
最新の年代のアンサーヴ遺跡のTRBの男性1個体(ans016、紀元前2810~紀元前2580年頃)では、より新しいHGからの遺伝子流動の証拠が見つかりました。ans016は地元のSr兆候を示さないので、この遺伝子流動事象はおそらく、ゴットランド島以外で起きました。それにも関わらず、近い過去のHG混合はスカンジナビア半島TRB集団内では一般的ではなかったようで、それは、ヴェステルイェートランドのファルビグデンの調査対象の105個体のうち女性2個体(FRA108、ROS027)のみが、近い過去のHGとの混合がある、と示唆されたからです[7]。さらに、3ヶ所の異なる巨石墓から発見されたこれらの個体は、年代がTRB末期段階で、以前にヴェステルイェートランドについて示唆されたように、緩やかな社会文化的境界および/もしくは人口統計学的勾配と、かもしれず、TRBとPWCの集団間の相互作用がこの時点でより一般的になったことを示唆しているかもしれません。
同様に、ゴットランド島のPWC個体群で見られるNFとの混合の大半も、新石器時代集団のスカンジナビア半島への最初の拡散の後ではあるものの、ゴットランド島における出現の前に起きたようです。しかし、アジュヴィーデとヴェーステルブイェルスの数個体では近い過去のNFとの混合の証拠が見つかり、これは、TRB集団とPWC集団との間で起きた継続的な遺伝子流動を示唆しています。本論文では、PWC(単一集団として)は、そのSHG祖先系統に加えて、約30%のNF/WHG混合祖先系統を示しており、こりはアンサーヴ遺跡関連人口集団からの遺伝子流動としてモデル化できる、と示されます。しかし、正確な混合割合は評価が困難で、それは、両集団の個体群がすでに異なる経路で混合していたからです。この二つの考古学的集団の個体間の遠い親族関係も検出されませんでした。
ゴットランド島における考古学的記録から、いくらかの長距離交易がある、と示され、PWCとTRBとの間の接触が示唆されます。ただ、たとえば、ファゲルヴィークのPWC遺跡やスウェーデン本土のアルヴァストラ杭上住居の土器様式で見られるような、二つの文化複合体の物質文化の混成の明確な指標はなく、先行研究は、一部の本土のPWC集団がTRB農耕民から工作を採用した、と提案しました。しかし、ゴットランド島では、むしろその後の年代のPWCの状況で、TRB期が終わった後で、丸砥石や家畜化された動物の骨格遺骸など新たな農耕要素が見つかります。PWCへのNFからの遺伝子流動の水準の解明には、ゴットランド島におけるTRB末期の追加のPWC埋葬のさらなる分析が必要です。
ゴットランド島がバルト海の中心に位置したことと、先史時代の海上慣習によって、さまざまな地理的地域からの疾患感染の機会が増えました。本論文は、異なる期間と異なる文化的帰属の3個体で、ペスト菌の証拠を検出できました。初期TRBの女性1個体(ans003、紀元前3490~紀元前3110年頃)には、さらに具体的に特定できないものの、基底部のペスト菌株を示唆する系統がありました。ファルビグデンで見られるように[7]、新石器時代のペストはこの期間に蔓延していました。
本論文は、スカンジナビア半島では以前に観察されていなかった、LNBA株による感染も報告します。支石墓の後期新石器時代の男性1個体(ans010、紀元前2030~紀元前1890年頃)は、ヨーロッパ大陸のLNBA株に感染していた可能性が最も高そうです。個体ans010は、エルシニア・エンテロコリチカにも感染していました。残念ながら、個体ans010はより古い埋葬構造に葬られていたので、文化的帰属は不明ですが、草原地帯関連祖先系統と地元ではない子供期のSr兆候を示したので、おそらくはペストの感染経路の証拠かもしれません。ただ、個体ans010は1点の歯のみによって表され、個体のゲノム(0.06倍)でもペストでもゲノム網羅率が低いため、さらなる分析を実行できませんでした。
興味深いことに、アジュヴィーデのPWC男性1個体(ajv58、紀元前2880~紀元前2630年頃)で見つかった第三の株は、ラトビアで見つかった最も基底部のRV2039系統とのより密接な類似性を示唆しています。これは東方との接触を示唆しているかもしれず、バルト海地域の後期櫛目文土器文化との、PWCの人工遺物と埋葬慣行の類似性に基づいて、以前に議論されました。興味深いことに、ペスト菌は同じPWC遺跡の同時代のイヌからも検出されました[57]ペスト菌とエルシニア・エンテロコリチカに関する本論文の結果は充分に裏づけられており、株の多様性およびこれらの人口集団と地域間の拡大に関するより明確な全体像を提供する系統発生分析の実行には、さらなる配列決定と捕獲濃縮戦略が必要でしょう。
まとめると、本論文は、遺伝的差異の分析によって、ゴットランド島の遺伝的および考古学的に異なる新石器時代2集団の人口統計学的歴史を調べました。ゴットランド島TRB集団は、現在のスカンジナビア半島やポーランドやドイツの同時代のTRB集団と祖先系統を共有している一方で、ある程度の水準の孤立も示します。さらに、ゴットランド島で起きたかもしれない、アンサーヴ遺跡のTRB集団とゴットランド島PWC集団との間の近い過去の混合のいくつかの証拠が見つかったものの、異なる集団間の相互作用のほとんどは過去に、ゴットランド島でPWCが出現する前に起きたようだ、と示されます。ゴットランド島のTRBとPWC両方の個体群や、TRB期の後のアンサーヴ遺跡の支石墓に埋葬された後期新石器時代の1個体で、異なるペスト菌株の証拠も見つかりました。したがって、ゴットランド島におけるTRB複合体の衰退にはさまざまな要因が関わっていたかもしれません。しかし、ペスト菌などの病原体がゴットランド島のこれらの人口集団に及ぼしたかもしれない程度については、さらなる調査が必要です。
参考文献:
Fraser M. et al.(2026): Ancestry, admixture, and pathogens in contemporaneous Neolithic farmers and foragers on the Island of Gotland. Communications Biology, 9, 972.
https://doi.org/10.1038/s42003-026-10498-0
[3]Allentoft ME. et al.(2015): Population genomics of Bronze Age Eurasia. Nature, 522, 7555, 167–172.
https://doi.org/10.1038/nature14507
関連記事
[4]Haak W. et al.(2015): Massive migration from the steppe was a source for Indo-European languages in Europe. Nature, 522, 7555, 207–211.
https://doi.org/10.1038/nature14317
関連記事
[5]Skoglund P. et al.(2014): Genomic Diversity and Admixture Differs for Stone-Age Scandinavian Foragers and Farmers. Science, 344, 6185, 747-750.
https://doi.org/10.1126/science.1253448
関連記事
[6]Malmström H. et al.(2019): The genomic ancestry of the Scandinavian Battle Axe Culture people and their relation to the broader Corded Ware horizon. Proceedings of the Royal Society B, 286, 1912, 20191528.
https://doi.org/10.1098/rspb.2019.1528
関連記事
[7]Seersholm FV. et al.(2024): Repeated plague infections across six generations of Neolithic Farmers. Nature, 632, 8023, 114–121.
https://doi.org/10.1038/s41586-024-07651-2
関連記事
[8]Allentoft ME. et al.(2024): 100 ancient genomes show repeated population turnovers in Neolithic Denmark. Nature, 625, 7994, 329–337.
https://doi.org/10.1038/s41586-023-06862-3
関連記事
[10]Coutinho A. et al.(2020): The Neolithic Pitted Ware culture foragers were culturally but not genetically influenced by the Battle Axe culture herders. American Journal of Physical Anthropology, 172, 4, 638–649.
https://doi.org/10.1002/ajpa.24079
関連記事
[14]Günther T, Malmström H, Svensson EM, Omrak A, Sánchez-Quinto F, Kılınç GM, et al. (2018) Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation. PLoS Biol 16(1): e2003703.
https://doi.org/10.1371/journal.pbio.2003703
関連記事
[23]Mittnik A. et al.(2018): The genetic prehistory of the Baltic Sea region. Nature Communications, 9, 442.
https://doi.org/10.1038/s41467-018-02825-9
関連記事
[24]Sánchez-Quinto F. et al.(2019): Megalithic tombs in western and northern Neolithic Europe were linked to a kindred society. PNAS, 116, 19, 9469–9474.
https://doi.org/10.1073/pnas.1818037116
関連記事
[56]Rascovan N. et al.(2019): Emergence and Spread of Basal Lineages of Yersinia pestis during the Neolithic Decline. Cell, 176, 1, 295–395.E10.
https://doi.org/10.1016/j.cell.2018.11.005
関連記事
[57]Susat J. et al.(2024): Neolithic Yersinia pestis infections in humans and a dog. Communications Biology, 7, 1013.
https://doi.org/10.1038/s42003-024-06676-7
関連記事
[60]Lazaridis I. et al.(2016): Genomic insights into the origin of farming in the ancient Near East. Nature, 536, 7617, 419–424.
https://doi.org/10.1038/nature19310
関連記事
[62]Allentoft ME. et al.(2024): Population genomics of post-glacial western Eurasia. Nature, 625, 7994, 301–311.
https://doi.org/10.1038/s41586-023-06865-0
関連記事
[65]Cassidy LM. et al.(2020): A dynastic elite in monumental Neolithic society. Nature, 582, 7812, 384–388.
https://doi.org/10.1038/s41586-020-2378-6
関連記事
[66]Ringbauer H, Novembre J, and Steinrücken M.(2021): Parental relatedness through time revealed by runs of homozygosity in ancient DNA. Nature Communications, 12, 5425.
https://doi.org/10.1038/s41467-021-25289-w
関連記事
[68]Günther T. et al.(2015): Ancient genomes link early farmers from Atapuerca in Spain to modern-day Basques. PNAS, 112, 38, 11917–11922.
https://doi.org/10.1073/pnas.1509851112
関連記事
[71]Narasimhan VM. et al.(2019): The formation of human populations in South and Central Asia. Science, 365, 6457, eaat7487.
https://doi.org/10.1126/science.aat7487
関連記事
以下の略称は、DNA(deoxyribonucleic acid、デオキシリボ核酸)、mtDNA(mitochondrial DNA、ミトコンドリアDNA)、mtHg(mtDNA haplogroup、ミトコンドリアDNAハプログループ)、YHg(Y-chromosome DNA haplogroup、Y染色体DNAハプログループ)、PCA(principal component analysis、主成分分析)、cM(centimorgan、センチモルガン)、ROH(runs of homozygosity、同型接合連続領域)、IBD(identity-by-descent、同祖対立遺伝子)、Nₑ(有効人口規模)、Sr(strontium、ストロンチウム)、UDG(uracil-DNA-glycosylase、ウラシルDNAグリコシラーゼ)、Mb(megabase、百万塩基対)、DATES(Distribution of Ancestry Tracts of Evolutionary Signals、進化兆候の祖先系統区域の分布)、PSMC(pairwise sequentially Markovian coalescent、対での逐次マルコフ合着)、CI(confidence interval、信頼区間)、SNV(Single Nucleotide Variant、一塩基多様体)、HG(hunter gatherer、狩猟採集民)、NF(Neolithic farmer、新石器時代農耕民)、ENF(Early Neolithic farmer、前期新石器時代農耕民)、EHG(HG-groups exhibiting an eastern genetic ancestry、東方遺伝的祖先系統を示す狩猟採集民集団)、WHG(western HG、西方狩猟採集民)、SHG(Scandinavian HG-group、スカンジナビア半島狩猟採集民集団)、ANE(Ancestral North Eurasian、古代北ユーラシア人)、SE(Sweden、スウェーデン)、DE(Deutschland、ドイツ)です。
以下の時代区分の略称は、N(Neolithic、新石器時代)、EN(Early Neolithic、前期新石器時代)、MN(Middle Neolithic、中期新石器時代)、LN(Late Neolithic、後期新石器時代)、LNBA(Late Neolithic to Bronze Age、後期旧石器時代~青銅器時代)、BA(Bronze Age、青銅器時代)です。
本論文で取り上げられる主要な病原体は、エルシニア属の、ペスト菌(Yersinia pestis)、エルシニア感染症(yersiniosis)の原因となるエルシニア・エンテロコリチカ(Yersinia enterocolitica)、仮性結核菌(Yersinia pseudotuberculosis)です。
本論文で取り上げられる主要な文化は、漏斗状ビーカー(漏斗形杯)文化(Funnelbeaker Culture、Trichterbecherkultu、Trichterbecher、略してFBCもしくはTRB)、円洞尖底陶文化(Pitted Ware Culture、略してPWC)、縄目文土器文化(Corded Ware culture、略してCWC)、戦斧文化(Battle Axe Culture、略してBAC)、球状アンフォラ(両取って付き壺)文化(Globular Amphora Culture、略してGAC)、ズロタ(Zlota)文化、櫛目文土器(Combed Ware)文化、線形陶器(Linear Pottery、Linearbandkeramik、略してLBK)文化です。
本論文で取り上げられる主要なスウェーデンの地域と遺跡は、ゴットランド島のアンサーヴ(Ansarve、略してans)とアジュヴィーデ(Ajvide、略してajv)とヘモール(Hemmor、略してhem)とヴェーステルブイェルス(Västerbjers、略してvbj)、ストラ・カールソー(Stora Karlsö)島のストラ・フェルヴァー(Stora Förvar、略してsf)洞窟、ファルビグデン(Falbygden)、ムータラ(Motala)、フレールセガーデン(Frälsegården)のゲクヘム(Gökhem)教区、ヴェステルイェートランド(Västergötland)のレッスベルガ(Rössberga)、アルヴァストラ杭上住居(Alvastra Pile dwelling)です。
本論文で取り上げられる主要なスウェーデン以外の地域と遺跡は、フィンランドのファゲルヴィーク(Fagervik)、ラトビアのリニュカルンス(Riņņukalns)、リトアニアのギヴァカライ(Gyvakarai)、エストニアのクニラ(Kunila)、ドイツのヴァールブルク(Warburg)とブレッターヘーレ(Blätterhöhle)とタンガーミュンデ(Tangermünde)とゾルズム(Sorsum)とバールベルゲ(Baalberge)とシュトゥットガルト(Stuttgart)、ルクセンブルクのロシュブール(Loschbour)です。
●要約
二つの考古学的文化複合体である新石器時代のFBCとPWCは、紀元前3300~紀元前2800年頃の間の約500年間共存していました。FBC農耕民とPWC採食民の祖先系統はそれぞれ、ほぼヨーロッパ新石器時代農耕民およびヨーロッパ中石器時代採食民と一致しますが、ゴットランド島の集団間の直接的な相互作用は解明されていません。本論文は、アンサーヴのFBC支石墓から得られた、中期新石器時代の高網羅率のゲノム1点と後期新石器時代の低網羅率のゲノム1点を提示します。本論文は、これら中期新石器時代農耕民(6個体)と採食民(19個体)と後期新石器時代1個体における、祖先系統と混合と病原体を調べます。農耕民と採食民との間で近い過去の遺伝子流動が起きていたかもしれないものの、ほとんどの遺伝子流動はゴットランド島での共存の前に起きていた、と分かりました。3文化集団における異なるペスト菌株の証拠も見つかり、ペストが異なる生計戦略の集団あいだで広がっていた、と示されます。
●研究史
考古ゲノミクスの急速な発達のため今や、ヨーロッパ北部におけるゲノム差異の現在のパターンの一部は、いくつかの大きな先史時代の人口統計学的事象によって形成された、と分かっています。これらには、ヨーロッパ大陸における北方への先駆的な狩猟採集民集団の旧石器時代および中石器時代の表記後の拡散や、前期新石器時代農耕民(ENF)集団の拡大期における中石器時代狩猟採集民(HG)の置換および同化や、それに続く、ヨーロッパへといわゆる草原地帯関連祖先系統の遺伝的構成要素をもたらした、縄目文土器複合体(CWC)の集団の拡大[3、4]が含まれます。
ヨーロッパ新石器時代における移住の全体的なパターンは知られていますが、ヨーロッパの多くの地域における人口統計学的および社会的発展は充分には調べられてこなかったので、採食民と農耕民との間の相互作用の異なる独特なパターンを示すかもしれません。ゴットランド島(図1)はこの点で特異であり、バルト海の中央に位置するものの、スカンジナビア半島南部で見られる一般的な新石器時代の発展を反映している[5~8]だけではなく、局所的な発展も示しています[10、14]。以下は本論文の図1です。
スカンジナビア半島に当初定住したのは南方からの中石器時代HG集団で、この集団はWHGの遺伝的祖先系統を示していましたが[8]、EHGを示すHG集団による北東からの遺伝的祖先系統も示しており、WHGとEHGのさまざまな程度の混合がスカンジナビア半島HG集団(SHG)に生じ、それはゴットランド島でも見られます[14]。スカンジナビア半島南部(ゴットランド島を含みます)の新石器化は、漏斗形杯文化複合体(TRB、紀元前4000~紀元前2800年頃)と関連しています。この移行は、おもにENFの遺伝的祖先系統を示すものの、ある程度のENFとHGの混合も示す集団の出現と関連しています[5、7、8、23、24]。最近、現在のデンマークとスウェーデンとポーランドのTRB関連個体群は遺伝的な下部クラスタ(まとまり)を形成する、と示されており、スカンジナビア半島TRB集団の供給源人口集団のヨーロッパ北東部起源が示唆されています[8]。紀元前3600年頃、新たな巨石埋葬伝統が支石墓(ドルメン)および羨道墓の形態でTRB複合体に現れ、広範なTRB圏内の継続的な長距離の接触が示唆されます(図1a)。
スカンジナビア半島TRB集団における採食民との混合構成要素はWHG関連で、混合はおもにスカンジナビア半島に到達する前に起きていた、と示唆されましたが[8]、SHG関連集団との局所的混合も示唆されました[5]。しかし、新石器時代の採食民集団もスカンジナビア半島の大半に存在しており、つまり、海洋民のPWC(紀元前3300~紀元前2300年頃)で、PWC集団は局所的なTRB集団との接触を示しており、これら同時代の集団間の直接的な相互作用があったかもしれません。PWCは現在のデンマーク北東部の沿岸部地域から最大でスウェーデン中央部とノルウェー南部とゴットランド島とバルト海の西方諸島に沿って繁栄しました。PWCは広範に分布しましたが、その遺伝学的分析は以前には、ゴットランド島のPWC関連個体群でのみ行なわれており、おもにSHG祖先系統で、わずかな程度のENFとの混合が伴う、と明らかになりました[10]。現在のデンマークでは、ゴットランド島PWCと同年代の2個体はSHG祖先系統しか示さない(ENFとの混合を示しません)、と分かり[8]、人口史における違いが示唆されます。
PWC関連のヒト遺骸は、スカンジナビア半島本土の考古学的記録では稀です。しかし、TRBとPWCの両方と関連する個体の遺骸は、ゴットランド島では考古学的記録に見られます。最近まで、中期新石器時代のゴットランド島には、農耕と畜産を取り入れた季節的な生計慣行を伴う1集団が居住していた、と示唆されていました。しかし、考古遺伝学的研究では、異なる生計経済および文化的慣行と関連する考古学的な2集団は異なる遺伝的変異性を、したがって異なる人口史と祖先系統を示している、と分かってきました[24]。この2集団はゴットランド島で500年以上共存しましたが、その社会的接触、したがってゴットランド島におけるTRB集団とPWC集団との間の遺伝子流動の可能性は、充分には調べられてきませんでした。
TRB土器と家畜化された動物遺骸を伴う少なくとも10ヶ所の遺跡がゴットランド島では発見されてきましたが、これまでに唯一確認されている支石墓TRB埋葬は、アンサーヴの支石墓に位置しています(図1)。アンサーヴの支石墓に埋葬された個体群に関する以前の考古遺伝学的分析では、男性系統における経時的な連続性や、男性2個体間の2親等の親族関係が明らかになり、埋葬を使用したのは父方居住社会だったことが示唆されています[24]。これらの結果は、スウェーデン本土の同時代のTRBに関する最近の調査結果と一致し、ゴットランド島における局所的なTRB集団について、アンサーヴ遺跡の埋葬の特異性が強調されています。
ゴットランド島の旧海岸沿いでは、少なくとも20ヶ所の異なるPWC集落遺跡が報告されており(図1)、そのうちいくつかには、多くの平地墓を伴う埋葬地が含まれています。新たな遺跡が依然として発見され続ており、PWCが多く存在したことを示唆しています。したがって、TRBおよびPWC複合体はスカンジナビア半島中期新石器時代(MN)においてゴットランド島で共存しており、その期間は紀元前3300~紀元前2800年頃の間ですが、紀元前2700年頃以後には、PWC複合体のみが存続しました。
紀元前2800年頃、考古学的記録は現在のスウェーデンが変わり、BAC/CWC複合体が出現します(図1b)。考古遺伝学的研究では、この移行は草原地帯関連祖先系統構成要素を伴うヒトの拡散と一致する、と示されています。BAC/CWC期は、ゴットランド島のTRB末期と重なっています。BACの人工遺物がたまにゴットランドで発見され、一部の人工遺物様式はいくつかのPWC埋葬でさえ発見されてきましたが、これまで、典型的なBAC埋葬もしくは集落は、見つかっていません。PWC埋葬の個体群では、BACの文化的影響がある埋葬の個体群でさえ、草原地帯関連祖先系統が検出されていません[10]。
興味深いことに、この地域においてヒトの移動性と相互作用と文化的および社会的変容が高かったこの期間に、病原体、より具体的にはペスト菌が広範に拡大下ようで、いくつかのペスト菌株が最近報告されました。これまでで最古級の基底部系統がラトビアのリニュカルンスの狩猟漁撈採集民(紀元前3350~紀元前3100年頃)で見つかり、これはバルト海地域におけるCWCの出現前となります。しかし、ペストの繰り返しの発生がファルビグデンのTRB共同体やスカンジナビア半島南部全域のいくつかの他の遺跡で発見されてきており、いわゆる新石器時代のペストはこれらの地域で5000年前頃には一般的だった、と示されます[7、56]。追加の系統がドイツ西部中央のヴァールブルクのネクロポリス(大規模共同墓地)の同時代の2個体(紀元前3340~紀元前2900年頃)で発見されており、そのうち1系統はファルビグデンのペスト単系統群(クレード)内に位置するようです[57]。数世紀後、CWCの移住と同時に、いわゆるLNBAペスト系統の追加の下部がバルト海地域に到達し、リトアニアのギヴァカライ(紀元前2621~紀元前2472年頃)とエストニアのクニラ(紀元前2574~紀元前2340年頃)の2個体で見つかり、両者は草原地帯関連祖先系統を示しています。したがって、この病原体はおそらく新石器時代の衰退期に重要な役割を果たし[7、56]、ゴットランドにおける存在の可能性は、スカンジナビア半島新石器時代におけるゴットランド島の人口統計学的発展に新たな情報を追加します。
この研究では、アンサーヴの支石墓から発見された6個体[24]が、先行研究[10]で提示されたゴットランド島のPWC遺跡(アジュヴィーデ、ヘモール、ヴェーステルブイェルス)の19個体とともに再分析され、TRB複合体とPWC複合体が共存していた頃のゴットランド島における人口統計学的発展が解明されました。アンサーヴ遺跡個体のうち1個体で新たな高網羅率のゲノムデータ、支石墓に埋葬されたその後の年代の1個体で新たな低網羅率のゲノムデータが提示されます。最後に、ゴットランド島の個体群におけるペスト菌の古代株の存在の可能性が調べられました。
●用語
本論文では集団遺伝学的分析において、「前期~中期」新石器時代の背景のすべての考古学的個体/集団を指す場合、「新石器時代農耕民(NF)」との総称を使い、それは、これらの個体が大まかには同じENFの人口史を共有しているからです。分類表示に関するより多くの情報については、表1と補足データ1と補足第4.1項を参照してください。
●ゲノム配列決定と人口構造
先行研究[24]で提示された学童期(6~7歳から12~13歳頃)の男性個体SE_TRB_ans017(紀元前3330~紀元前2930年頃)について、27.42倍のUDG処理ゲノムが生成されました。同様に、先行研究で提示されたその後の埋葬使用から発見された成人個体SE_LN_ans010(紀元前2030~紀元前1890年頃)について、0.06倍のゲノム網羅率が得られ、この個体は本論文では男性と判断できました。配列データは古代DNAに特徴的な性質を示し、それは、短い断片長、0.15~0.58の割合の断片末端におけるシトシンの脱アミノ化で、汚染水準は低いと分かりました。片親性遺伝標識(母系のミトコンドリアと父系のY染色体)は、SE_TRB_ans017ではmtHg-HV0aとYHg-I2a1a2a1a1(S2703)、SE_LN_ans010ではmtHg-U5b2a1a1で、以前に提示された結果[24]と一致し、SE_LN_ans010のYHgはI2a2a(PF3918)と判断できました(表1)。
アンサーヴ遺跡個体とPWC個体群が、中石器時代と前期青銅器時代の間の古代ゲノム規模データのある刊行されている207個体とともに、ヒト起源第2版データ[60]のヨーロッパと近東とコーカサスの67人口集団の現代人991個体を用いた最初の2主成分に投影されました。具体的には、ゴットランド島の個体群が同時代のヨーロッパ中央部の文化集団の個体群と比較され、スカンジナビア半島TRBはPCA空間ではポーランドのGACおよびズロタ文化の背景の個体群とクラスタ化し(まとまり)、同様の水準のHGとの混合を共有している、と分かりました(図2b)。一部の同時代のNF個体(たとえば、ブレッターヘーレやタンガーミュンデやゾルズム)はHGとの混合割合が増加しており、スカンジナビアNFクラスタ(まとまり)とWHGとの間で勾配を形成します。以前に示されたように[10]、PWC個体群はNFの方向においてわずかにSHGから離れた別のクラスタを形成しており、それはNFとの低水準の混合によって引き起こされています。さらに、アンサーヴの支石墓のLNの男性1個体(SE_LN_ans010、紀元前2030~紀元前1890年頃)は、草原地帯関連祖先系統を示すため他の個体とともに勾配に位置しており、この個体はこれまでにゴットランド島で見つかった、草原地帯関連祖先系統を有する最古級の個体となります。以下は本論文の図2です。
NFにおける遺伝的構造をさらに調べると、NF個体群は大まかには異なる地理的拡散の主要な3クラスタに分かれ、それは共有浮動f3統計に基づくと、(1)スカンジナビア半島クラスタ、(2)ポーランドクラスタ、(3)EN~MNヨーロッパ中央部およびアナトリア半島クラスタ(図3a)と観察されました。集団水準では、ポーランドとスカンジナビア半島のTRBのクラスタ化(まとまること)が確証されますが[62]、DE_TRB_バールベルゲ_QLB_CP個体とのつながりも見られます。個体水準では、より多くの遺伝的浮動が観察され、アンサーヴ個体におけるある程度の孤立が示唆され、これによって、アンサーヴ個体群はファルビグデン(ゲクヘムとレッスベルガ)のスカンジナビア半島本土のTRB背景とは異なることになります(図3a)。アンサーヴ個体と250基超の巨石埋葬があるファルビグデン地域のTRB個体群との間の文化は、その地域で見つかった多くの血縁関係によっても説明可能かもしれません。以下は本論文の図3です。
●中期新石器時代ゴットランド島における社会的構造および動態
先行研究は、ゴットランド島のTRBおよびPWC個体群における最大で2親等の密接な親族関係のつながりを論証しました[10、24]。本論文でも、年代的により古い女性2個体(ans003とans005)が他のアンサーヴ個体とよりも相互の方と多くの浮動を共有していた、と分かりました(f4統計)。最大で7親等の親族関係を検出できるancIBDが実行され、アンサーヴ遺跡における2親等の男性との関係[24]とは別に、上述の女性間で3親等の関係が見つかりました。しかし、その近縁性の性質を判断するには充分なデータがなく、両個体の網羅率は推奨される0.4倍の境界値を下回っていました(表1)。
PWCの3集団において親族関係が見つかり、SE_PWC_vbj001とSE_PWC_vbj008との間の2親等の近縁性が確認され、祖父母と孫の関係と予測され、SE_PWC_vbj006とSE_PWC_vbj013との間の別の3親等の関係(曾祖父母と曽孫)が見つかりました。これら3ヶ所の遺跡内および遺跡間両方で、2親等から3~4親等のいくつかの他の親族関係が見られ、これはゴットランド島のPWCの長い人口連続性および異なる遺跡間の接触も示唆しています。
異なる石器時代集団の過去の人口規模を理解するために、いくつかの異なる手法が適用されました。SE_TRB_ans017とSHG_ゴットランド_sf12とWHG_ロシュブールとDE_LBK_シュトゥットガルトの高網羅率のゲノムのPSMC分析から、アンサーヴ遺跡のTRB集団はSHGおよびWHGと比較してNₑはより大きいものの、ENFと比較するとより小さい、と分かりました。これらの観察は条件付ヌクレオチド多様性推定[5]および補完データ(網羅率1倍超のゲノム)のROH分析[65]ともほぼ一致しており、ROH分析では、NF個体群は大まかには、長い(1.6Mb超)ROH上のいくらかの僅かな差異に沿って、同じ割合の短いROH断片(1.6Mb未満)を示しました。
一方で、中石器時代および新石器時代のHGは、NF集団よりも高い割合の長短のROH断片を示し、HG人口集団がより小さな集団で生きていたことを示唆しています。PWC個体群は、おそらくはNFからの遺伝子流動の結果として、中石器時代HGよりもこれらの断片の割合が低くなっています。NFと比較してのゴットランド島のPWC個体群におけるより小さなNₑは、同型接合性の断片(4cM超)とNₑの分析からさらに確証されました。
しかし、個体SE_TRB_ans017は染色体のほとんどにも存在していたより高い割合の長いROH断片を示しており、これは近親交配を示唆し、この個体は密接な親族関係にある両親の子供でもあった、と予測されました[65、66]。この観察は、高網羅率のゲノムと以前に刊行された網羅率6.8倍のゲノム[24]の両方を用いた、SE_TRB_ans017の近交係数推定値(F=0.10)と一致します。
SE_TRB_ans017における近親交配の生物学的影響を評価するために、有害な多様体について高網羅率のゲノムが検査されました。SNPEffを用いて、6点の多様体が「影響度大」と分類されましたが、これらの多様体のほとんどは、以前には知られていなかった変異部位に生じていたか、異型接合として存在していたか、機能的影響が知られていないかのいずれかで、その生物学的影響の解釈を複雑にしています。
●混合パターン分析
アンサーヴ遺跡個体群はHGとのある程度の水準の遺伝子流動を、PWC個体群はNFとのある程度の遺伝子流動を示し、この2集団はゴットランド島で500年以上共存していたので、この混合がゴットランド島で共存期間に起きた可能性があるのかどうか、調べられました。NFはヨーロッパ大陸での拡大期にWHGと混合したことが、以前に示されました[4、5、68]。したがって、アンサーヴ遺跡個体群の祖先はスカンジナビア半島への到来前にWHGとの混合の証拠を示しました[8]。しかし、他の研究は、スカンジナビア半島NFとSHGとの間のその後の混合も提案しました[5]。
qpGraphを用いて、異なる想定がモデル化されました。アンサーヴ遺跡のTRB集団における経時的なHGとの混合を調べたいので、アンサーヴ遺跡の各個体について個体水準の分析が実行されましたが、PWC個体群は1集団として調べられました。まず、WHGとアナトリア_NとSHG_ムータラのアンサーヴ遺跡TRB個体群およびPWC集団への混合があるものの、これらの集団間の混合を伴わない想定が検証されました。アンサーヴ遺跡の6個体のうち4個体(ans005、ans008、ans017、ans016)はそのモデルと一致します。さらに、これらの結果から、アンサーヴ遺跡個体群は、農耕民/WHG混合祖先系統に加えて、SHG関連人口集団からの9~12%の間の遺伝子流動を示すことも示唆されます。興味深いことに、このSHGとの混合は、これらの個体の放射性炭素年代を考慮すると、経時的に増加したようです。アンサーヴ遺跡個体群(ans003とans014)は低い割合のSHGとの混合を示しましたが(それぞれ、7%超と2%)、モデルへの適合度は低くなりました。
次に、PWC集団がSHGとアンサーヴ遺跡TRB個体群との間の混合としてモデル化できるのかどうか、評価されました。このモデルは、アンサーヴ遺跡TRB個体群関連供給源とPWC集団の祖先との間の遺伝子流動(ゴットランド島もしくは大陸のどちらかで起きました)を示唆します。本論文の結果から、1集団としてのPWC個体群は、その祖先系統の31~36%が、農耕民祖先系統の代理として機能する可能性が高い、アンサーヴ遺跡TRB個体群的祖先系統に由来するとモデル化できる、と示唆されます。
次に、アンサーヴ_TRB(高網羅率のゲノムans017によって表されます)とWHG_ロシュブールとSHG_ゴットランド_SF12に加えてDE_LBK_シュトゥットガルトとの間のより密接な遺伝的類似性が調べられ、SE_TRB_ans017はWHG的な人口集団とよりもSHG的な人口集団の方と多くの新しい祖先系統を共有している、と分かりました。
これらの結果に基づいて、上述の高網羅率のゲノムが、「メタANE」や「メタWHG」や「メタEHG」や「fastsimcoal2.7を用いてのメタ新石器時代」[69]と分類表示される標本抽出されていないメタ個体群(アレルの交換といった、ある水準で相互作用をしている、空間的に分離している同種の個体群の集団)がモデル化され、アンサーヴ遺跡個体群の人口史が推定されました。4通りのモデルが検証され、それは、(1)アンサーヴ人口集団への混合の波はない、(2)LBK+アンサーヴ集団の祖先へのWHGの混合の波、(3)アンサーヴ集団へのSHGの混合の波、(4)LBK+アンサーヴ集団の祖先へのWHGの混合の波に加えて、アンサーヴ集団へのSHGの混合の波です。その結果、モデル(4)の可能性が最も高かった、と分かりました(図3c)。SE_TRB_ans017における狩猟採集民祖先系統の合計(SHG+WHG)は38%(95%CIで11.24~44.71%)となり、これはqpGraphから推測された推定値と一致します。
次に、スカンジナビア半島TRB個体群へのHGとの混合の時期がDATES[71]で調べられ、採食民とのこれらの遺伝子流動事象の大半は遠い祖先で起きており、スカンジナビア半島の新石器化に先行してヨーロッパ大陸でWHG関連人口集団からか、および/もしくはPWCの出現に先行するSHG関連人口集団とのスカンジナビア半島との混合のいずれかと示されます(図3b)。興味深いことに、最も多いSHG関連祖先系統を示すSE_TRB_ans016は、より近い過去の混合事象もしめしており、これはゴットランド島におけるPWC複合体の出現後です。さらに、PWC個体のほとんどで見られるNFとの混合事象は遠い祖先で起きており、それはスカンジナビア半島へのNFの拡散の後で、ゴットランド島におけるPWCの発展の前のことで、いくつかの個体(SE_PWC_ajv36、SE_PWC_ajv54、SE_PWC_vbj001、SE_PWC_vbj013、SE_PWC_vbj018)はより近い過去のNFとの混合を示し、これはゴットランド島で起きたかもしれません。
●アンサーヴ遺跡およびPWCの標本におけるペスト菌の検出
最後に、スカンジナビア半島とバルト海地域とヨーロッパ中央部における以前のペスト菌の報告を踏まえて、ペスト菌がゴットランド島のアンサーヴ遺跡およびPWC遺跡群に存在した可能性[5、10、24、68]が調べられました。
アンサーヴ遺跡の11個体およびPWCの21個体のライブラリ783点のうち、5個体(SE_TRB_ans003、SE_TRB_ans005、SE_TRB_ans007[24]、SE_PWC_ajv58、SE_LN_ans010)でペスト菌配列の存在の可能性の証拠が見つかりました。マッピング(多少の違いを許容しつつ、ゲノム配列内の類似性が高い処理を同定する情報処理)された読み取りの数が、堅牢な系統発生分析を可能とするにはあまりにも少なかったので、異なる戦略の組み合わせによって本論文の結果が証明され、それは、(1)エルシニア属の既知の全種の代表に対する競合的マッピング、(2)編集距離特性、(3)染色体とプラスミドにマッピングされた読み取りの数、(4)ペスト菌株間のSNVの分布です。
本論文の結果はすべての分析において、LNの1個体(ans010、紀元前2030~紀元前1890年頃)におけるペスト菌の存在を裏づけており、これは、最近の文献で定義された、LNBA系統に属する可能性が最も高そうな株です。この系統の構成員は、この標本の時間性から予測できます。この個体のより低い網羅率のデータで以前に検出されたエルシニア・エンテロコリチカの発見も確証され、これは両種【エルシニア・エンテロコリチカとペスト菌】の同時感染を示唆しているかもしれません。エルシニア・エンテロコリチカは致死的かもしれない感染性腸炎を引き起こし、これは一般的には感染した水と食料によって拡大し、一般的にはイノシシ科の生肉もしくは生焼けの肉を摂取することで感染します。それ以前の新石器時代のペスト菌株とエルシニア・エンテロコリチカの同時感染が、ファルビグデンのMNの1個体で以前に見つかりました[7]。以前に報告されたSE_PWC_ajv5873を含めて、本論文で分析された他のいくつかの個体でエルシニア・エンテロコリチカの証拠が見つかりましたが、これらの結果を確証するにはデータが少なすぎました。
同様に、ペスト菌の存在の証明は、他の4個体ではより困難でした。しかし、異なる証明分析によって提供される補完的証拠の組み合わせによって、アンサーヴ遺跡の埋葬の初期段階(ans003、紀元前3490~紀元前3110年頃)におけるペスト菌の存在を確認でき、これは、ペスト菌の典型的な3点のプラスミド(pMT1、pPCP1、pCD1)、密接に関連する祖先のエルシニア・エンテロコリチカとよりもペスト菌の方と近いの編集距離特性、通常はペスト菌の特徴であるいくつかのSNVの存在によって裏づけられます。観察されたSNVはペスト菌のほとんどの基底部株の一部との類似性を示唆していますが、どの株が最も近いのか、決定できませんでした。支石墓の他のMN2個体(ans005とans007)ではペスト菌の存在を明らかには確証できなかったので、これらの結果を完全に証明するには、より高度な配列決定の試みが必要でしょう。
しかし、ペスト菌は、通常はペスト菌に存在し、たとえば仮性結核菌には存在しない、いくつかのSNVによって証明されるように、アジュヴィーデのPWC遺跡のSE_PWC_ajv58(紀元前2880~紀元前2630年頃)には存在していた可能性が最も高い、と分かりました。さらに、最も基底部のRV2039株と、他のどの新石器時代およびLNBA株とよりも密接な類似性を示唆する、いくつかのSNVも特定され、この個体はバルト海地域においてHGに感染した株により近い株で感染した、と示唆されました。
●考察
本論文の分析から、ゴットランド島の最初の新石器時代農耕民(TRB)生活および社会的交流網、および同時代の(PWC複合体の)海洋HGへの独特な知見が得られました。これらの異なる考古学的集団は500年以上ゴットランド島で共存し、その人口統計学的背景や物質文化の表現や生計経済や生活様式は異なっていました。
TRB集団間の遺伝的類似性に関して、アンサーヴ遺跡個体群とスカンジナビア半島およびポーランドの他のTRB関連個体群[7、62]との間のつながりが確証されましたが、現在のドイツのTRB関連の1個体とのつながりも見つかり、TRB圏の集団間に共通の遺伝的起源が示唆されます。アンサーヴ遺跡の支石墓の存在から、ゴットランド島のTRB集団は、スカンジナビア半島およびヨーロッパ大陸に現れたのと同時に記念碑的埋葬を建てて、それはゴットランド島におけるTRB物質文化の最初の出現の500年以上後だったので、より大きなTRB複合体と接触していたに違いない、と確証されます。
アンサーヴ遺跡個体群は遺伝的には、他のTRB個体群および集団とよりも、相互の方と類似しているようで、これはゴットランド島における相対的な孤立に起因する可能性が高そうです。しかし、ゴットランド島全体の多くのTRB集落の存在とTRB関連の遺物の発見の多さから、より大きなTRB人口集団の存在があったに違いない、と示唆され、これはNₑの分析でも確証されます。アンサーヴ遺跡個集団がこのより大きな人口集団の適切な代表なのかどうか、依然として不明で、それは他のTRB関連埋葬がゴットランド島で発見されていないからです。
以前に示された男性の親族関係(ans014とans017)に加えて、アンサーヴ遺跡の埋葬の最古級の使用の女性2個体(ans003とans005)は3親等で親族関係にあった可能性が高いことも分かりました。これらの女性はおそらくイトコか、あるいは大オバとメイかもしれませんが、そのミトコンドリアハプロタイプに基づくと、厳格な母系親族関係は除外できます(表1)。興味深いことに、同時代の男性(ans008とans014)がYHgとmtHgの両系統を共有していても、密接な親族関係ではありません。しかし、埋葬には約30個体があり、少なくとも15個体は以前にMNと年代測定されていたので、スウェーデン本土の同時代の巨石埋葬で見られたように[7]、追加の親族関係があった可能性は高そうです。以前に示されたように[65、66]、SE_TRB_ans017はイトコ間の子供と予測され、近親交配の痕跡を示しました(F=0.10)。稀ですが、近親交配のいくつかの事例が他の新石器時代農耕民遺跡でも見つかってきました[7、65]。したがって、親族関係と密接な両親の近縁性から、アンサーヴ遺跡の支石墓は長期間継続した拡張家族の埋葬遺跡だった、と示唆されます。
PWC個体間で以前に報告された親族関係や、3ヶ所の遺跡(アジュヴィーデとヘモールとヴェーステルブイェルス)間の追加の親族関係が確証され、ゴットランド島の異なる地域の異なるPWC集団間の近い接触が示唆されます。ヘモール遺跡のより古い個体群では、アジュヴィーデおよびヴェーステルブイェルスと比較してわずかに高いNₑが観察され、これは最初の入植後のボトルネック(瓶首効果)とその後のPWC人口集団の孤立を示唆しているかもしれません。しかし、この瓶首効果はその後のPWC個体群における近親交配増加を示唆していません。
SHGからスカンジナビア半島TRBへの局所的な遺伝子流動はなかった、との以前の示唆[8]とは対照的に、アンサーヴ遺跡個体群におけるSHG関連の遺伝子流動の証拠が見つかりました。アンサーヴ遺跡個体群は、すでに混合していたNF/WHGに加えて、9~21%のSHG混合でモデル化できます。これらの遺伝子流動はおもにPWCの物質文化複合体の出現前に起きており(図3b)、スウェーデン本土もしくは恐らくゴットランド島のどちらかのSHG関連人口集団との混合で、それは、ゴットランド島には後期中石器時代物質文化の証拠がいくらかあるからです。
最新の年代のアンサーヴ遺跡のTRBの男性1個体(ans016、紀元前2810~紀元前2580年頃)では、より新しいHGからの遺伝子流動の証拠が見つかりました。ans016は地元のSr兆候を示さないので、この遺伝子流動事象はおそらく、ゴットランド島以外で起きました。それにも関わらず、近い過去のHG混合はスカンジナビア半島TRB集団内では一般的ではなかったようで、それは、ヴェステルイェートランドのファルビグデンの調査対象の105個体のうち女性2個体(FRA108、ROS027)のみが、近い過去のHGとの混合がある、と示唆されたからです[7]。さらに、3ヶ所の異なる巨石墓から発見されたこれらの個体は、年代がTRB末期段階で、以前にヴェステルイェートランドについて示唆されたように、緩やかな社会文化的境界および/もしくは人口統計学的勾配と、かもしれず、TRBとPWCの集団間の相互作用がこの時点でより一般的になったことを示唆しているかもしれません。
同様に、ゴットランド島のPWC個体群で見られるNFとの混合の大半も、新石器時代集団のスカンジナビア半島への最初の拡散の後ではあるものの、ゴットランド島における出現の前に起きたようです。しかし、アジュヴィーデとヴェーステルブイェルスの数個体では近い過去のNFとの混合の証拠が見つかり、これは、TRB集団とPWC集団との間で起きた継続的な遺伝子流動を示唆しています。本論文では、PWC(単一集団として)は、そのSHG祖先系統に加えて、約30%のNF/WHG混合祖先系統を示しており、こりはアンサーヴ遺跡関連人口集団からの遺伝子流動としてモデル化できる、と示されます。しかし、正確な混合割合は評価が困難で、それは、両集団の個体群がすでに異なる経路で混合していたからです。この二つの考古学的集団の個体間の遠い親族関係も検出されませんでした。
ゴットランド島における考古学的記録から、いくらかの長距離交易がある、と示され、PWCとTRBとの間の接触が示唆されます。ただ、たとえば、ファゲルヴィークのPWC遺跡やスウェーデン本土のアルヴァストラ杭上住居の土器様式で見られるような、二つの文化複合体の物質文化の混成の明確な指標はなく、先行研究は、一部の本土のPWC集団がTRB農耕民から工作を採用した、と提案しました。しかし、ゴットランド島では、むしろその後の年代のPWCの状況で、TRB期が終わった後で、丸砥石や家畜化された動物の骨格遺骸など新たな農耕要素が見つかります。PWCへのNFからの遺伝子流動の水準の解明には、ゴットランド島におけるTRB末期の追加のPWC埋葬のさらなる分析が必要です。
ゴットランド島がバルト海の中心に位置したことと、先史時代の海上慣習によって、さまざまな地理的地域からの疾患感染の機会が増えました。本論文は、異なる期間と異なる文化的帰属の3個体で、ペスト菌の証拠を検出できました。初期TRBの女性1個体(ans003、紀元前3490~紀元前3110年頃)には、さらに具体的に特定できないものの、基底部のペスト菌株を示唆する系統がありました。ファルビグデンで見られるように[7]、新石器時代のペストはこの期間に蔓延していました。
本論文は、スカンジナビア半島では以前に観察されていなかった、LNBA株による感染も報告します。支石墓の後期新石器時代の男性1個体(ans010、紀元前2030~紀元前1890年頃)は、ヨーロッパ大陸のLNBA株に感染していた可能性が最も高そうです。個体ans010は、エルシニア・エンテロコリチカにも感染していました。残念ながら、個体ans010はより古い埋葬構造に葬られていたので、文化的帰属は不明ですが、草原地帯関連祖先系統と地元ではない子供期のSr兆候を示したので、おそらくはペストの感染経路の証拠かもしれません。ただ、個体ans010は1点の歯のみによって表され、個体のゲノム(0.06倍)でもペストでもゲノム網羅率が低いため、さらなる分析を実行できませんでした。
興味深いことに、アジュヴィーデのPWC男性1個体(ajv58、紀元前2880~紀元前2630年頃)で見つかった第三の株は、ラトビアで見つかった最も基底部のRV2039系統とのより密接な類似性を示唆しています。これは東方との接触を示唆しているかもしれず、バルト海地域の後期櫛目文土器文化との、PWCの人工遺物と埋葬慣行の類似性に基づいて、以前に議論されました。興味深いことに、ペスト菌は同じPWC遺跡の同時代のイヌからも検出されました[57]ペスト菌とエルシニア・エンテロコリチカに関する本論文の結果は充分に裏づけられており、株の多様性およびこれらの人口集団と地域間の拡大に関するより明確な全体像を提供する系統発生分析の実行には、さらなる配列決定と捕獲濃縮戦略が必要でしょう。
まとめると、本論文は、遺伝的差異の分析によって、ゴットランド島の遺伝的および考古学的に異なる新石器時代2集団の人口統計学的歴史を調べました。ゴットランド島TRB集団は、現在のスカンジナビア半島やポーランドやドイツの同時代のTRB集団と祖先系統を共有している一方で、ある程度の水準の孤立も示します。さらに、ゴットランド島で起きたかもしれない、アンサーヴ遺跡のTRB集団とゴットランド島PWC集団との間の近い過去の混合のいくつかの証拠が見つかったものの、異なる集団間の相互作用のほとんどは過去に、ゴットランド島でPWCが出現する前に起きたようだ、と示されます。ゴットランド島のTRBとPWC両方の個体群や、TRB期の後のアンサーヴ遺跡の支石墓に埋葬された後期新石器時代の1個体で、異なるペスト菌株の証拠も見つかりました。したがって、ゴットランド島におけるTRB複合体の衰退にはさまざまな要因が関わっていたかもしれません。しかし、ペスト菌などの病原体がゴットランド島のこれらの人口集団に及ぼしたかもしれない程度については、さらなる調査が必要です。
参考文献:
Fraser M. et al.(2026): Ancestry, admixture, and pathogens in contemporaneous Neolithic farmers and foragers on the Island of Gotland. Communications Biology, 9, 972.
https://doi.org/10.1038/s42003-026-10498-0
[3]Allentoft ME. et al.(2015): Population genomics of Bronze Age Eurasia. Nature, 522, 7555, 167–172.
https://doi.org/10.1038/nature14507
関連記事
[4]Haak W. et al.(2015): Massive migration from the steppe was a source for Indo-European languages in Europe. Nature, 522, 7555, 207–211.
https://doi.org/10.1038/nature14317
関連記事
[5]Skoglund P. et al.(2014): Genomic Diversity and Admixture Differs for Stone-Age Scandinavian Foragers and Farmers. Science, 344, 6185, 747-750.
https://doi.org/10.1126/science.1253448
関連記事
[6]Malmström H. et al.(2019): The genomic ancestry of the Scandinavian Battle Axe Culture people and their relation to the broader Corded Ware horizon. Proceedings of the Royal Society B, 286, 1912, 20191528.
https://doi.org/10.1098/rspb.2019.1528
関連記事
[7]Seersholm FV. et al.(2024): Repeated plague infections across six generations of Neolithic Farmers. Nature, 632, 8023, 114–121.
https://doi.org/10.1038/s41586-024-07651-2
関連記事
[8]Allentoft ME. et al.(2024): 100 ancient genomes show repeated population turnovers in Neolithic Denmark. Nature, 625, 7994, 329–337.
https://doi.org/10.1038/s41586-023-06862-3
関連記事
[10]Coutinho A. et al.(2020): The Neolithic Pitted Ware culture foragers were culturally but not genetically influenced by the Battle Axe culture herders. American Journal of Physical Anthropology, 172, 4, 638–649.
https://doi.org/10.1002/ajpa.24079
関連記事
[14]Günther T, Malmström H, Svensson EM, Omrak A, Sánchez-Quinto F, Kılınç GM, et al. (2018) Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation. PLoS Biol 16(1): e2003703.
https://doi.org/10.1371/journal.pbio.2003703
関連記事
[23]Mittnik A. et al.(2018): The genetic prehistory of the Baltic Sea region. Nature Communications, 9, 442.
https://doi.org/10.1038/s41467-018-02825-9
関連記事
[24]Sánchez-Quinto F. et al.(2019): Megalithic tombs in western and northern Neolithic Europe were linked to a kindred society. PNAS, 116, 19, 9469–9474.
https://doi.org/10.1073/pnas.1818037116
関連記事
[56]Rascovan N. et al.(2019): Emergence and Spread of Basal Lineages of Yersinia pestis during the Neolithic Decline. Cell, 176, 1, 295–395.E10.
https://doi.org/10.1016/j.cell.2018.11.005
関連記事
[57]Susat J. et al.(2024): Neolithic Yersinia pestis infections in humans and a dog. Communications Biology, 7, 1013.
https://doi.org/10.1038/s42003-024-06676-7
関連記事
[60]Lazaridis I. et al.(2016): Genomic insights into the origin of farming in the ancient Near East. Nature, 536, 7617, 419–424.
https://doi.org/10.1038/nature19310
関連記事
[62]Allentoft ME. et al.(2024): Population genomics of post-glacial western Eurasia. Nature, 625, 7994, 301–311.
https://doi.org/10.1038/s41586-023-06865-0
関連記事
[65]Cassidy LM. et al.(2020): A dynastic elite in monumental Neolithic society. Nature, 582, 7812, 384–388.
https://doi.org/10.1038/s41586-020-2378-6
関連記事
[66]Ringbauer H, Novembre J, and Steinrücken M.(2021): Parental relatedness through time revealed by runs of homozygosity in ancient DNA. Nature Communications, 12, 5425.
https://doi.org/10.1038/s41467-021-25289-w
関連記事
[68]Günther T. et al.(2015): Ancient genomes link early farmers from Atapuerca in Spain to modern-day Basques. PNAS, 112, 38, 11917–11922.
https://doi.org/10.1073/pnas.1509851112
関連記事
[71]Narasimhan VM. et al.(2019): The formation of human populations in South and Central Asia. Science, 365, 6457, eaat7487.
https://doi.org/10.1126/science.aat7487
関連記事

この記事へのコメント