コロンビアの古代人のゲノムデータ
コロンビアの古代人の新たなゲノムデータを報告した研究(Krettek et al., 2025)が公表されました。[]は本論文の参考文献の番号で、当ブログで過去に取り上げた研究のみを掲載しています。本論文は、北アメリカ大陸と中央アメリカ大陸から南アメリカ大陸への移動経路で重要な位置を占めるコロンビアの、ボゴタ・アルティプラーノ(Bogotá Altiplano、ボゴタ高原)で発見された古代人21個体の新たなゲノムデータを報告しています。ボゴタ・アルティプラーノの先土器時代の狩猟採集民は、人類の最初の南アメリカ大陸への拡散に由来する、以前には知られていなかった基底部系統を表しています。この遺伝的祖先系統(祖先系譜、祖先成分、祖先構成、ancestry)は、古代もしくは現代の南アメリカ大陸の他地域集団に影響を及ぼしておらず、2000年前頃までにヘレラ(Herrera)土器複合体と関連する中央アメリカ大陸からの人口集団によって置換されました。その後、この地域では、大きな文化的変化にも関わらず、ムイスカ(Muisca)文化期にかけて遺伝的連続性が見られます。この地域の古代人集団は、コロンビアの先住民とよりもパナマ地峡のチブチャ語族(Chibchan)話者の方と高い類似性を示しており、その後の拡散事象によるチブチャ語族関連祖先系統の希釈が示唆されます。
本論文で主要な分析対象となる遺跡は以下の通りです。コロンビアでは、チェクア(Checua)遺跡、プルニア(Purnia)遺跡、ラグナ・デ・ラ・ヘレラ(Laguna de la Herrera)遺跡、ソアチャ(Soacha)遺跡、ラス・デリカス(Las Delicias)遺跡。アメリカ合衆国では、モンタナ州西部のアンジック(Anzick)遺跡。ベネズエラでは、ラス・ロカス(Las Locas)遺跡。ペルーでは、クンカイチャ(Cuncaicha)遺跡とラウリコチャ(Lauricocha)遺跡、チリのロス・リーレス(Los Rieles)遺跡。
●要約
アメリカ大陸先住民集団に関する遺伝学的研究は、アメリカ大陸の人口統計学的歴史に関する理解を一変させました。しかし、これまで古代ゲノムで調べられてこなかった地域であるコロンビアは、南アメリカ大陸への入口です。本論文は、6000~500年前頃の間のコロンビアのボゴタ・アルティプラーノの21個体のゲノム規模データを報告します。先土器時代の狩猟採集民は、最初の南アメリカ大陸への拡散に由来する、以前には知られていなかった基底部系統を表している、と明らかになります。これらの狩猟採集民は古代の北アメリカ大陸集団との差異的な類似性を有しておらず、古代もしくは現在の南アメリカ大陸人口集団へ遺伝的に寄与もしませんでした。2000年前頃までに、この在来の遺伝的祖先系統はヘレラ土器複合体と関連する中央アメリカ大陸から到来した人口集団によって置換され、それは、大きな文化的変化にも関わらずムイスカ期まで存続しています。これら古代のアルティプラーノ個体群は、コロンビアの先住民とよりもパナマ地峡のチブチャ語族話者の方と高い類似性を示しており、その後の拡散事象によるチブチャ語族関連祖先系統の希釈が示唆されます。
●研究史
古代および現在の先住民集団に関する遺伝学的研究は、アメリカ大陸の定住の理解にかなり貢献してきました。それらの研究では、北極圏以外のアメリカ大陸先住民は、アジア東部とシベリアの古代人集団間の2万年以上前のアジア北東部のどこかでの遺伝的混合に由来する、と明らかになりました[1~4]。北アメリカ大陸における最初の到来後の16000年前頃に、この遺伝的祖先系統は北方アメリカ大陸先住民と南方アメリカ大陸先住民として知られる2系統に分岐します[1、5、6]。北方アメリカ大陸先住民祖先系統はおもに北アメリカ大陸の古代および現在の人口集団に限られていますが、南方アメリカ大陸先住民系統は南方へとさらに拡大し、古代および現在の南アメリカ大陸先住民の主要な祖先系統構成要素となっています。
南方アメリカ大陸先住民祖先系統は北アメリカ大陸内で少なくとも3下位系統へと多様化し、つまり、アメリカ合衆国のモンタナ州西部のクローヴィス(Clovis)文化関連のアンジック1号個体と関連する系統、カリフォルニア州のチャネル諸島の古代の個体群で見られる系統、中央アメリカ大陸および南アメリカ大陸の現代人の主要な祖先系統供給源を表している系統です[7~9]。これら各下位系統は、南アメリカ大陸古代人の遺伝子プールに祖先系統の波を提供しました。チリの12000年前頃の個体とブラジルの10000年前頃の個体は遺伝的に、1万年前頃以降の南アメリカ大陸沿岸やコーノ・スール(Southern Cone、南回帰線以南の南アメリカ大陸の南端部)やアンデス山脈の個体群とよりも、アンジック1号の方と関連しています[8、10]。さらにカリフォルニアのチャネル諸島個体群の祖先系統は4200年前頃までアンデス山脈中央部で見られ、その後この地域に広く拡大するようになりました[8、11]。しかし、南アメリカ大陸へのこれらの人口移動の正確な時期は、これまでほぼ未解決のままです。
コロンビア地峡地域はホンジュラスの沿岸からコロンビア北部のアンデス山脈まで広がっており、アメリカ大陸の移住の理解に重要です。コロンビア地峡地域は、南北のアメリカ大陸間の陸橋であるだけではなく、メソアメリカとアマゾンとアンデス山脈の3ヶ所の主要な分か地域の中心に位置しています。ヨーロッパ人との接触時に、コロンビア地峡地域に居住していたのは人口集団の複雑な混在で、それはおもにチブチャ語族とチョコアン語(Chocoan)とカリブ(Carib)語の話者でした。それらの人口集団のうち、チブチャ語族話者は人口統計学と文化的多様性と陸上での分布の観点ではこの地域において最も広く拡大していました。チブチャ語族は複数の高度に異なる下位系統のある語族で、その多くはコロンビア地峡地域のさまざまな領域で現在も依然として話されています。チブチャ語族祖語の故地および古さとチブチャ語族話者の祖先は、依然として議論の対象です。語彙と文法の観点での語族内の高度な差異から、チブチャ語族は古く、数千年前に多様化し始めた、と示唆されています。しかし、最初の多様化の場所は、依然として不確かです。ほとんどの学者は、このチブチャ語族祖語は、チブチャ語族の最も多い数が現在話されている中央アメリカ大陸南部で多様化し始めた、と考えています。しかし、一部の証拠から、チブチャ語族祖語は南アメリカ大陸に起源があり、その後でずっと遅い年代に中央アメリカ大陸で多様化した、と示唆されています。古代および現在のコロンビア地峡の先住民集団の遺伝学的研究は、チブチャ語族話者と主に関連する独特な祖先系統構成要素を明らかにしました。しかし、ミトコンドリアDNA(mtDNA)研究が中央アメリカ大陸からコロンビアおよびベネズエラへのチブチャ語族関連祖先系統の移動を示唆したのに対して、ゲノム規模研究は逆の南方から北方への人口移動を支持しました[23]。後者のモデルによると、中央アメリカ大陸のチブチャ語族話者はこの地域の最初の移住者ではなく、南アメリカ大陸から中央アメリカ大陸へのより新しい逆移住に由来します[23]。
コロンビア地峡地域の最南端は、アルティプラーノ・クンディボヤケンセ(Altiplano Cundiboyacense、以下アルティプラーノ)です。コロンビアのアンデス山系における平均標高2600mのこの高原には、後期更新世から古代の狩猟採集民集団が暮らしていました。先土器時代の前期および中期完新世段階(11500~4000年前頃)には、アルティプラーノの人口集団は複数の文化変容を経ており、最も顕著なりは、定住の増加と、狩猟採集民生計から園耕慣行および森林管理の導入への移行です。しかし、トウモロコシ栽培の最初の明確な証拠が出現したのは、後期更新世初期の3800年前頃以降でした。
その後の形成期(3000~1000年前頃)には、独特な種類の土器がアルティプラーノに出現し、これはヘレラ土器複合体と呼ばれており、文献ではヘレラ期(2800~1200年前頃)としても知られています。アルティプラーノのヘレラ関連集団が同じ場所での在来狩猟採集民の発展に由来したのか、それともこの地域への人口拡散の結果だったのかどうか、依然として激しく議論されています。1200年前頃には、ムイスカ期として知られる文化段階がアルティプラーノで始まり、16世紀半ばのスペイン植民地体制まで続きました。ほとんどの利用可能な証拠は、先行するヘレラ期との人口連続性を示唆しています。ムイスカ期は、人口増加や農耕および交易の発展や社会的および政治的複雑化の相対的に連続的な過程によって特徴づけられます。これらの要因はムイスカ文化の形成に大きな役割を果たし、ヨーロッパ人の植民地化までアルティプラーノを支配したチブチャ語族話者人口集団が生じました。
いくつかの研究は古代のコロンビア個体群からのmtDNAデータを報告しましたが、この地域のゲノム規模データはこれまで依然として完全に欠けています。この研究では、アルティプラーノの2ヶ所の地域、つまりボゴタ(Bogotá)高原とロス・クロス(Los Curos)の古代人21個体のmtDNAおよびゲノム規模データが生成されました。本論文のデータは6000~500年前頃の間の時間横断区にまたがっており、以下の4点の重要な問題の調査の機会を提供します。それは、(1)アルティプラーノの先土器時代個体群はどの南方アメリカ大陸先住民の遺伝的祖先系統に由来しますか?(2)ヘレラ期およびムイスカ期と関連する文化的変容には移住および人口統計学的変化が伴っていましたか?(3)チブチャ語族話者で観察される遺伝的祖先系統は、アルティプラーノの古代の個体群の遺伝的祖先系統とどのように関連していますか?(4)生成された古代ゲノムとコロンビアおよび近隣地域の現在の先住民共同体の既存のゲノムデータとの間の遺伝的関係は、どのようなものですか?
●倫理声明
本論文は、先スペイン期個体群に関する古代DNA研究が、現在の先住民共同体に重大な影響を及ぼす可能性を認識しています。したがって、ボゴタ高原に位置するスバ(Suba)およびレスグアルド・デ・スバ(Resguardo de Suba)のムイスカ人の代表であるグアルディア先住民ムイスカ(Guardia Indígena Muisca)との接触を取り、研究結果について議論し、地域の歴史と価値と伝統に敬意を払う形で研究結果を提示しました。この試みは刊行物以外にも、同等の共同宣伝や範囲外の活動に及びます。共同体の構成員との会議および地元の考古学者と人類学者への発表の間に、古代の個体群の遺伝的祖先系統に関する調査結果は追加の分析および/もしくはデータでさらに改良できる、と強調されました。さらに、遺伝学的結果は独立しており、文化的帰属意識の概念と融合されるべきではない、と強調されました。コロンビアの先住民共同体と関連する問題に取り組む科学者として、共同体に基づく知識の豊かさに敬意を払い、評価します。
●データセットと古代DNAの信頼性
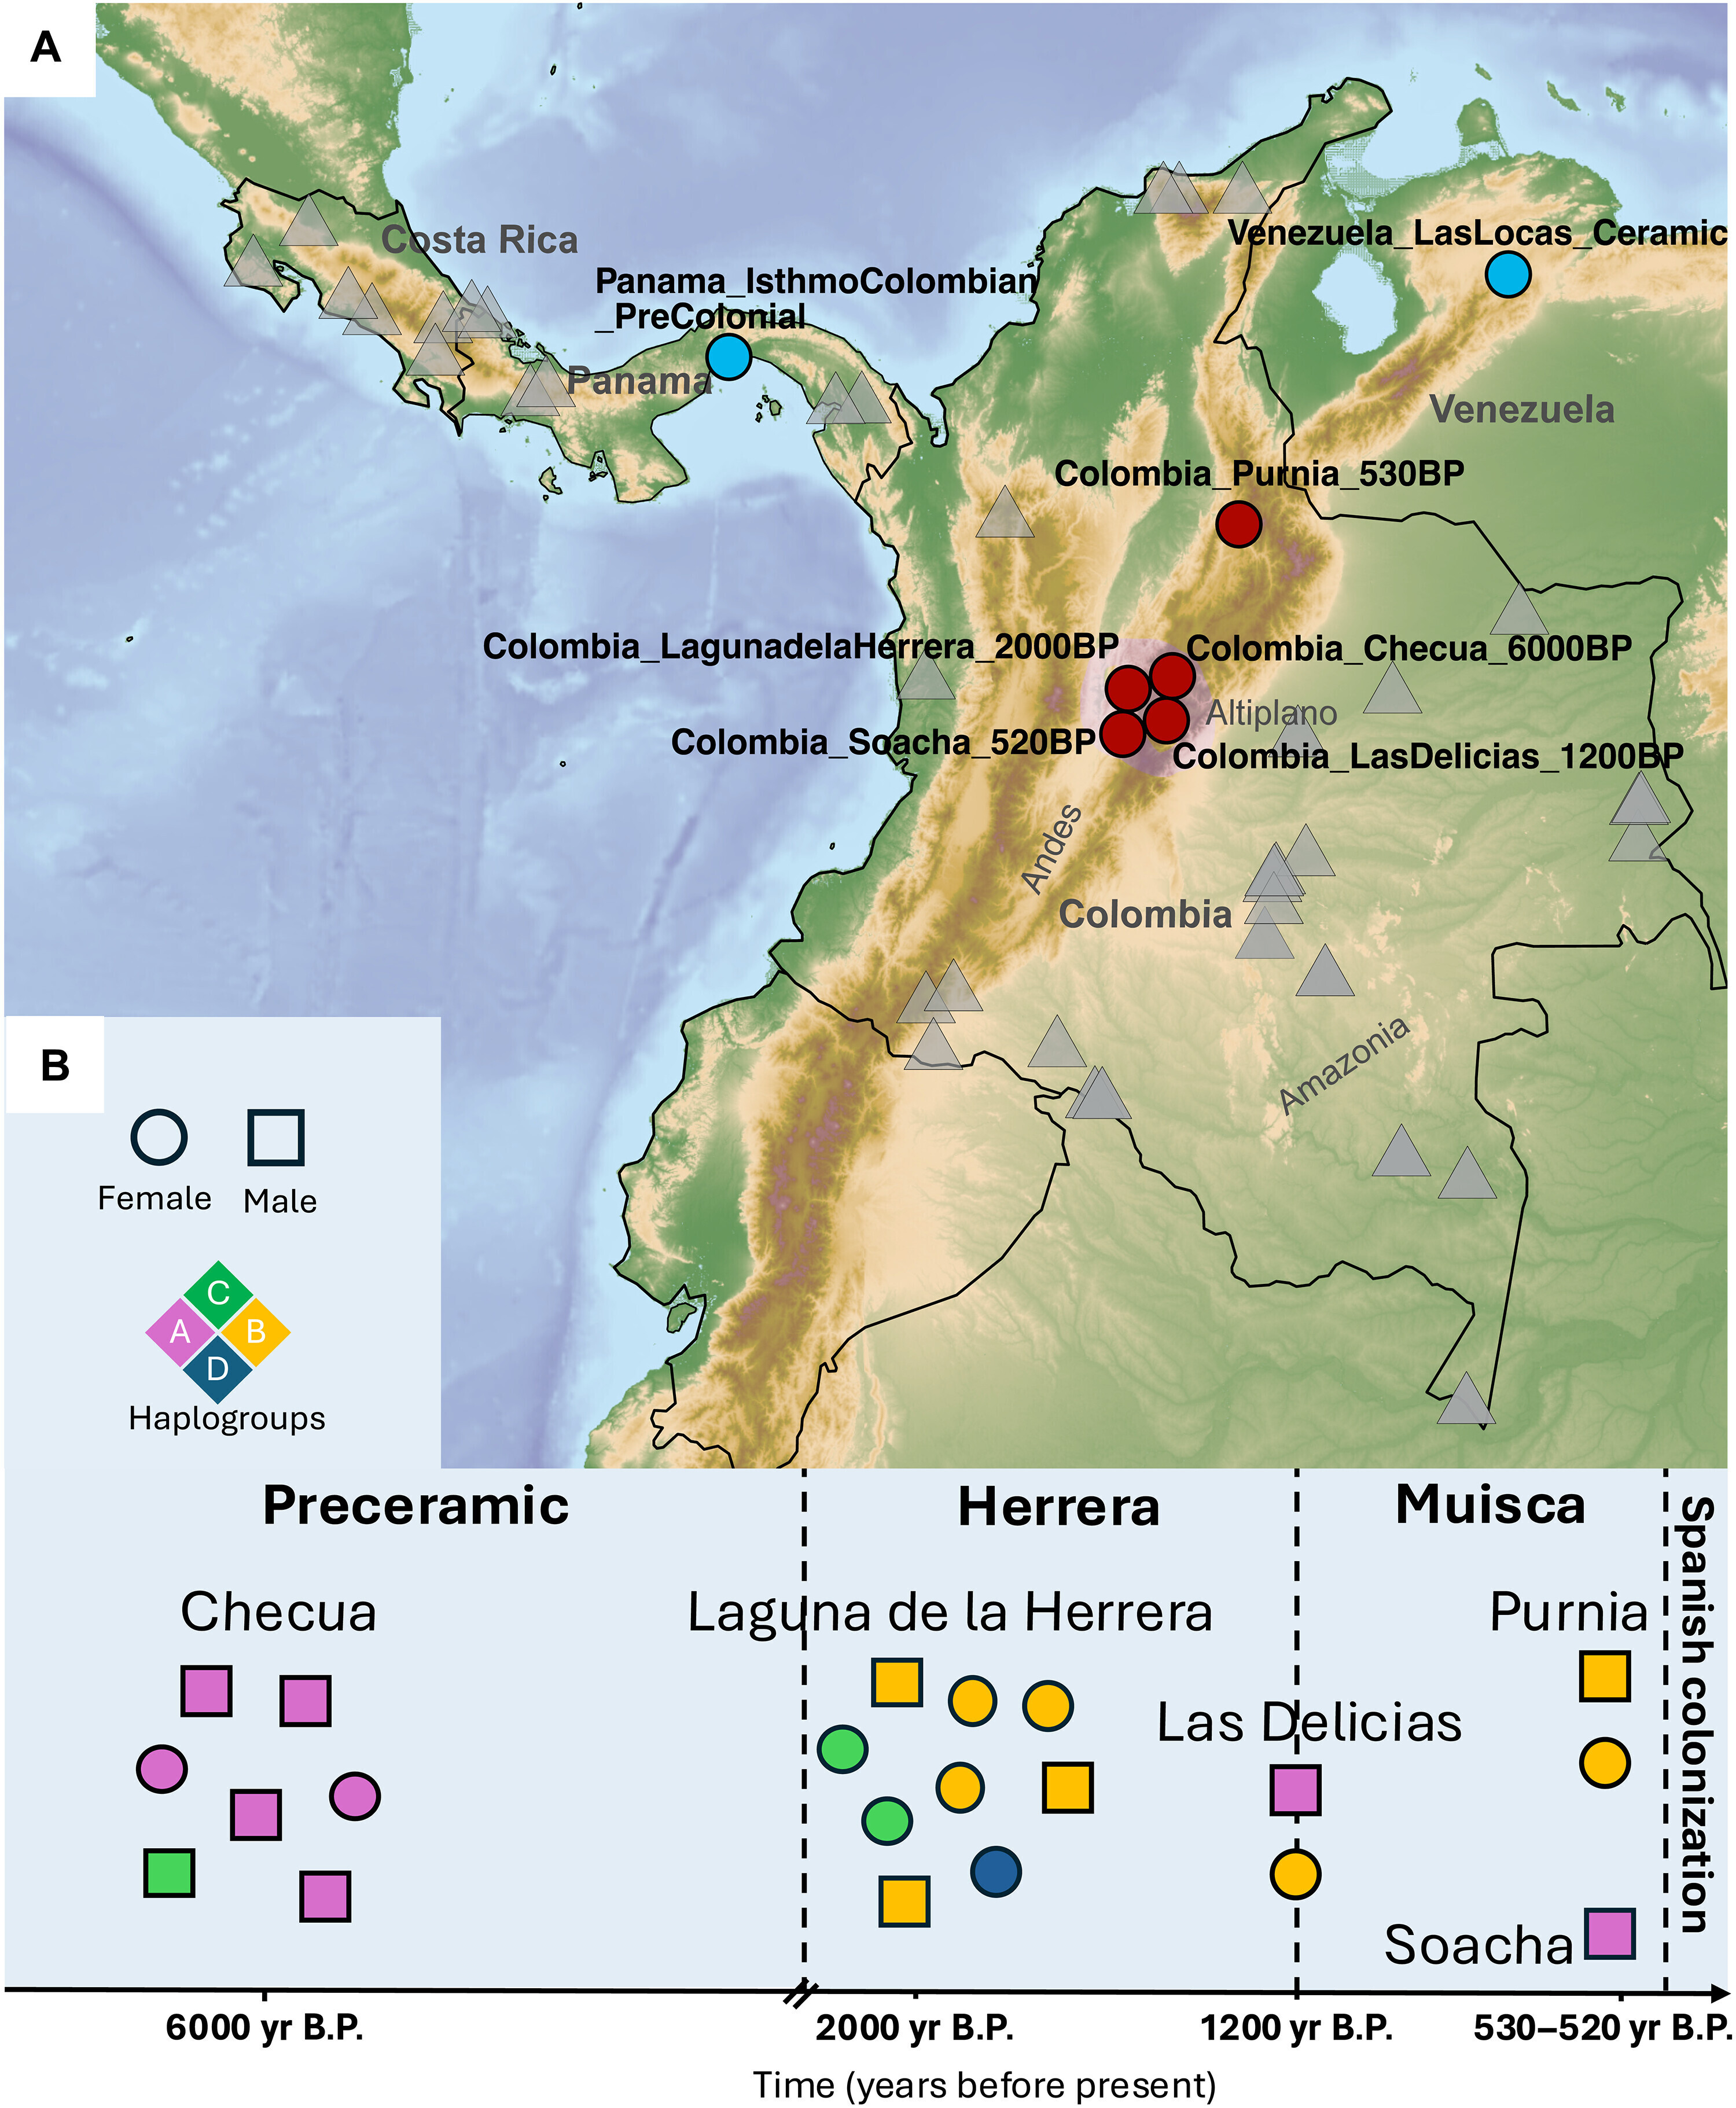
アルティプラーノの5ヶ所の遺跡から、約5500年間の古代ゲノム時間横断区にまたがるデータが報告されます(図1A)。生成されたデータセットに含まれるのは、先土器時代の狩猟採集民7個体(コロンビア_チェクア_6000年前)、ヘレラ期の9個体(コロンビア_ラグナ・デ・ラ・ヘレラ_2000年前)、全員ボゴタ高原のムイスカ文化の初期および最終段階の両方と関連する3個体(コロンビア_ラス・デリカス_1200年前、コロンビア_ソアチャ_520年前)、グアネ(Guane)人口集団と関連するロス・クロス地域のさらに北方の2個体(コロンビア_プルニア_530年前)です。以下は本論文の図1です。
これらのデータを得るために、側頭骨の錐体部と歯からDNAが抽出され、二本鎖遺伝的ライブラリが生成されて、完全なmtDNAと124万ゲノム規模SNP(Single Nucleotide Polymorphism、一塩基多型)の標的一式(124万SNP)の両方でDNAが捕獲されました。イルミナ(Illumina)社の構築基盤でライブラリが配列決定され、177102~912488ヶ所の間のSNP網羅率が得られました。mtDNAとX染色体の汚染推定値を通じて古代DNAの信頼性がさらに評価され、すべての事例でそれぞれ4%と5%未満でした。生成された古代人のゲノム規模データは、世界中の人口集団の124万SNP[37]上の差異で構築された主成分分析(principal component analysis、略してPCA)に投影されました。全個体は現代のアメリカ大陸先住民の予測される差異内に収まり、非アメリカ大陸先住民の祖先系統での実質的な汚染はないことがさらに確証されました。
●片親性遺伝標識と人口構造
遺伝学的性別決定によって、本論文のデータセットにおいて女性10個体と男性11個体の存在が明らかになり、男性11個体は全員、Y染色体ハプログループ(YHg)Q1b1aおよびその下位単系統群に属しています。Q1b1aはアメリカ大陸先住民において優勢なYHgで、本論文のデータはコロンビアの古代人内の高頻度を確証します。現代のコロンビアの先住民において最も一般的なmtDNAハプログループ(mtHg)はA2とB2とC1で、D4h3aはかなりの低頻度です。この一般的な傾向は本論文の古代人の標本一式で確証され、最高頻度はmtHg-B2dで、それに続くのがA2とC1である一方で、mtHg-D1は1個体のみでした(図1B)。mtHg-A2の最も高い割合は、同じ遺跡のより古い個体群で以前に示されたように、コロンビア_チェクア_6000年前集団で見られます。
同祖対立遺伝子(identity-by-descent、略してIBD)状態と同型接合連続領域(runs of homozygosity、略してROH)を用いて[41]、全個体間の親族関係や遠い近縁性と近親交配水準が推定されました。前者が個体間の密接な近親関係(最大3親等まで)を説明するのに対して、IBDとROHは共有している祖先や近親婚や有効人口規模についての情報をもたらします。コロンビア_チェクア_6000年前において、4組の2親等および3親等の関係が検出されました。チェクア遺跡で配列決定された7個体のうち4個体は男性で、親族関係にある個体は同じYHgを共有していましたが、mtHgは共有していませんでした。コロンビア_ラグナ・デ・ラ・ヘレラ_2000年前の分析された個体は親族関係が少なく、1組のみが親子関係(FORM006とFORM004)で、2親等の関係(FORM004とFORM008)が別にありました。さらに、近親交配パターンがつねに行なわれていた証拠は見つからず、男性個体間の長いIBD断片り共有は稀です。4 cM(センチモルガン)以上のROHが全個体に存在し、最高頻度はコロンビア_チェクア_6000年前で見られました。ROHの分布は、コロンビア_チェクア_6000年前の有効人口規模がその後のコロンビアの古代人集団よりも3~8倍小さかったことを示唆しています。これは、アルティプラーノの狩猟採集民共同体内の小さな人口規模と、それに続くヘレラ期とムイスカ期における急激な人口増加との考古学的記述と一致しています。その後の集団遺伝学的分析については、1親等および2親等の親族を除外し、遺伝的外れ値が存在しないことを確証した後で、年代と考古学的遺跡に基づいて個体は集団にまとめられました。最後に、これらのデータはアメリカ大陸の利用可能な古代および現在の個体群と組み合わされました。
●先土器時代狩猟採集民は以前には知られていなかった基底部系統に由来します
アルティプラーノの狩猟採集民が南方アメリカ大陸先住民祖先系統のどの特定の祖先系統の分枝に由来するのか判断するために、一連のf₄統計が用いられました。チリ_ロス・リーレス_12000年前が南アメリカ大陸におけるアンジック1号祖先系統の最大で、ペルー_クンカイチャ_4200年前が最高の割合のカリフォルニアのチャネル諸島祖先系統の個体群の一つであり、ペルー_ラウリコチャ_8600年前がこれら2祖先系統のどちらも示さないことを考慮して、これらの分析は設計されました。コロンビア_チェクア_6000年前がペルー_ラウリコチャ_8600年前よりもアンジック1号との高い遺伝的類似性を示さない一方で、チリ_ロス・リーレス_12000年前はコロンビア_チェクア_6000年前よりもアンジック1号と密接に関連している、と分かり、アルティプラーノの分析された狩猟採集民における有意なアンジック1号関連祖先系統の欠如が示唆されます。同様にf4統計では、コロンビア_チェクア_6000年前は古代カリフォルニアのチャネル諸島個体群明確な類似性を有していない、と明らかになります(図2A)。以下は本論文の図2です。

本論文で組み合わされた調査結果から、コロンビア_チェクア_6000年前は南アメリカ大陸へのアンジック1号関連もしくはカリフォルニアのチャネル諸島個体群関連の拡大に属しておらず、南アメリカ大陸の祖先系統の主要な供給源を表す系統[8]に由来することと一致する、と示されます。この系統は、少なくとも9000年前頃から、南アメリカ大陸の複数の地域において現在の個体群にまで長期の遺伝的連続性を有している、と示されました[8]。したがって、コロンビア_チェクア_6000年前が南アメリカ大陸の古代および現在の人口集団と差異的な類似性を示すのかどうか、f₃形式(ムブティ人、古代/現代のアメリカ大陸先住民;コロンビア_チェクア_6000年前)の外群f₃統計で検証されました。この分析から、コロンビア_チェクア_6000年前は北アメリカ大陸よりも中央アメリカ大陸および南アメリカ大陸の人口集団の方と多くの遺伝的浮動を共有しているものの、中央アメリカ大陸および南アメリカ大陸のどの人口集団と共有する特定のアレルを示さない(図2B)、と明らかになり、これはコロンビア_チェクア_6000年前が深く分岐した南アメリカ大陸系統に由来することと一致します。古代の狩猟採集民集団と本論文のデータセットで利用可能な古代もしくは現在のアメリカ大陸先住民個体群との間の遠い類似性の可能性について検証する、f₄形式(ムブティ人、コロンビア_チェクア_6000年前;古代/現代のアメリカ大陸先住民、古代/現代のアメリカ大陸先住民)のf₄統計の一式で、この仮定が形式的に調べられました。外群f₃統計で観察されたように、有意な類似性は中央アメリカ大陸および南アメリカ大陸個体群が北アメリカ大陸個体群と比較された場合にのみ観察されます。代わりにf₄統計は、古代と現代の中央アメリカ大陸および南アメリカ大陸の人口集団間の比較でそれぞれゼロと一致すると分かりました。
まとめると、これらの結果は、事実上ほんどの南アメリカ大陸先住民に対する外群としてのコロンビア_チェクア_6000年前の位置づけを示唆しています。形式的にこの配置を検証するために、アメリカ大陸の入植史における主要な人口統計学的事象[8]を要約するqpGraph系統樹がモデル化されました。混合図の可能性のある場所にコロンビア_チェクア_6000年前を位置づけると、この集団を中央アメリカ大陸および南アメリカ大陸人口集団の最初の拡散[5、8]に直接的に由来する以前には特徴づけられていない系統としてモデル化する場合のみ、統計的に堅牢な適合が得られました。
最後に、本論文のアルティプラーノの2000年前頃以後の古代人のゲノムデータが分析され、可能性のある局所的な遺伝的連続性の存在が調べられました。f₄統計(ムブティ人、コロンビア_チェクア_6000年前;コロンビア古代人、古代/現代のアメリカ大陸先住民)では、コロンビア_チェクア_6000年前はアルティプラーノのその後のすべての古代人集団と等しく遠いものの、この集団が本論文のデータセットの他のあらゆる南アメリカ大陸人口集団とよりもその後のコロンビアの古代人の方と密接に関連しているわけでもない、と示すことができます。全体的に、実行された分析は6000年前頃と2000年前頃の間のアルティプラーノにおける大きな遺伝的置換の堅牢な証拠を提供します。
●少なくとも2000年前頃までに起きたアルティプラーノにおける遺伝的置換
アルティプラーノの配列決定されたすべての古代の個体遺伝的組成に関する概要を得るために、より広範な地域の他の古代人集団および現在のアメリカ大陸先住民との比較で、非先住民祖先系統が示されていないか隠されている個体のみを含めて、教室無ADMIXTURE分析が実行されました(図3A)。この解析の結果、コロンビア_チェクア_6000年前の遺伝的特性はその後のすべてのコロンビアの古代人とは大きく異なっている、と確証されます。次に、2000~500年前頃の間のアルティプラーノ個体群はひじょうに類似した遺伝的組成を示します。コロンビア_チェクア_6000年前でも見られる祖先系統構成要素に加えて、これらのより新しい個体群は1400~600年前頃の間の年代のパナマの古代の個体群において大量に見られる祖先系統を高い割合で有しています。同様の祖先系統特性は2400年前頃のベネズエラの土器関連個体群でも観察されますが[44]、遺跡内の変異性はより大きくなっています。以下は本論文の図3です。
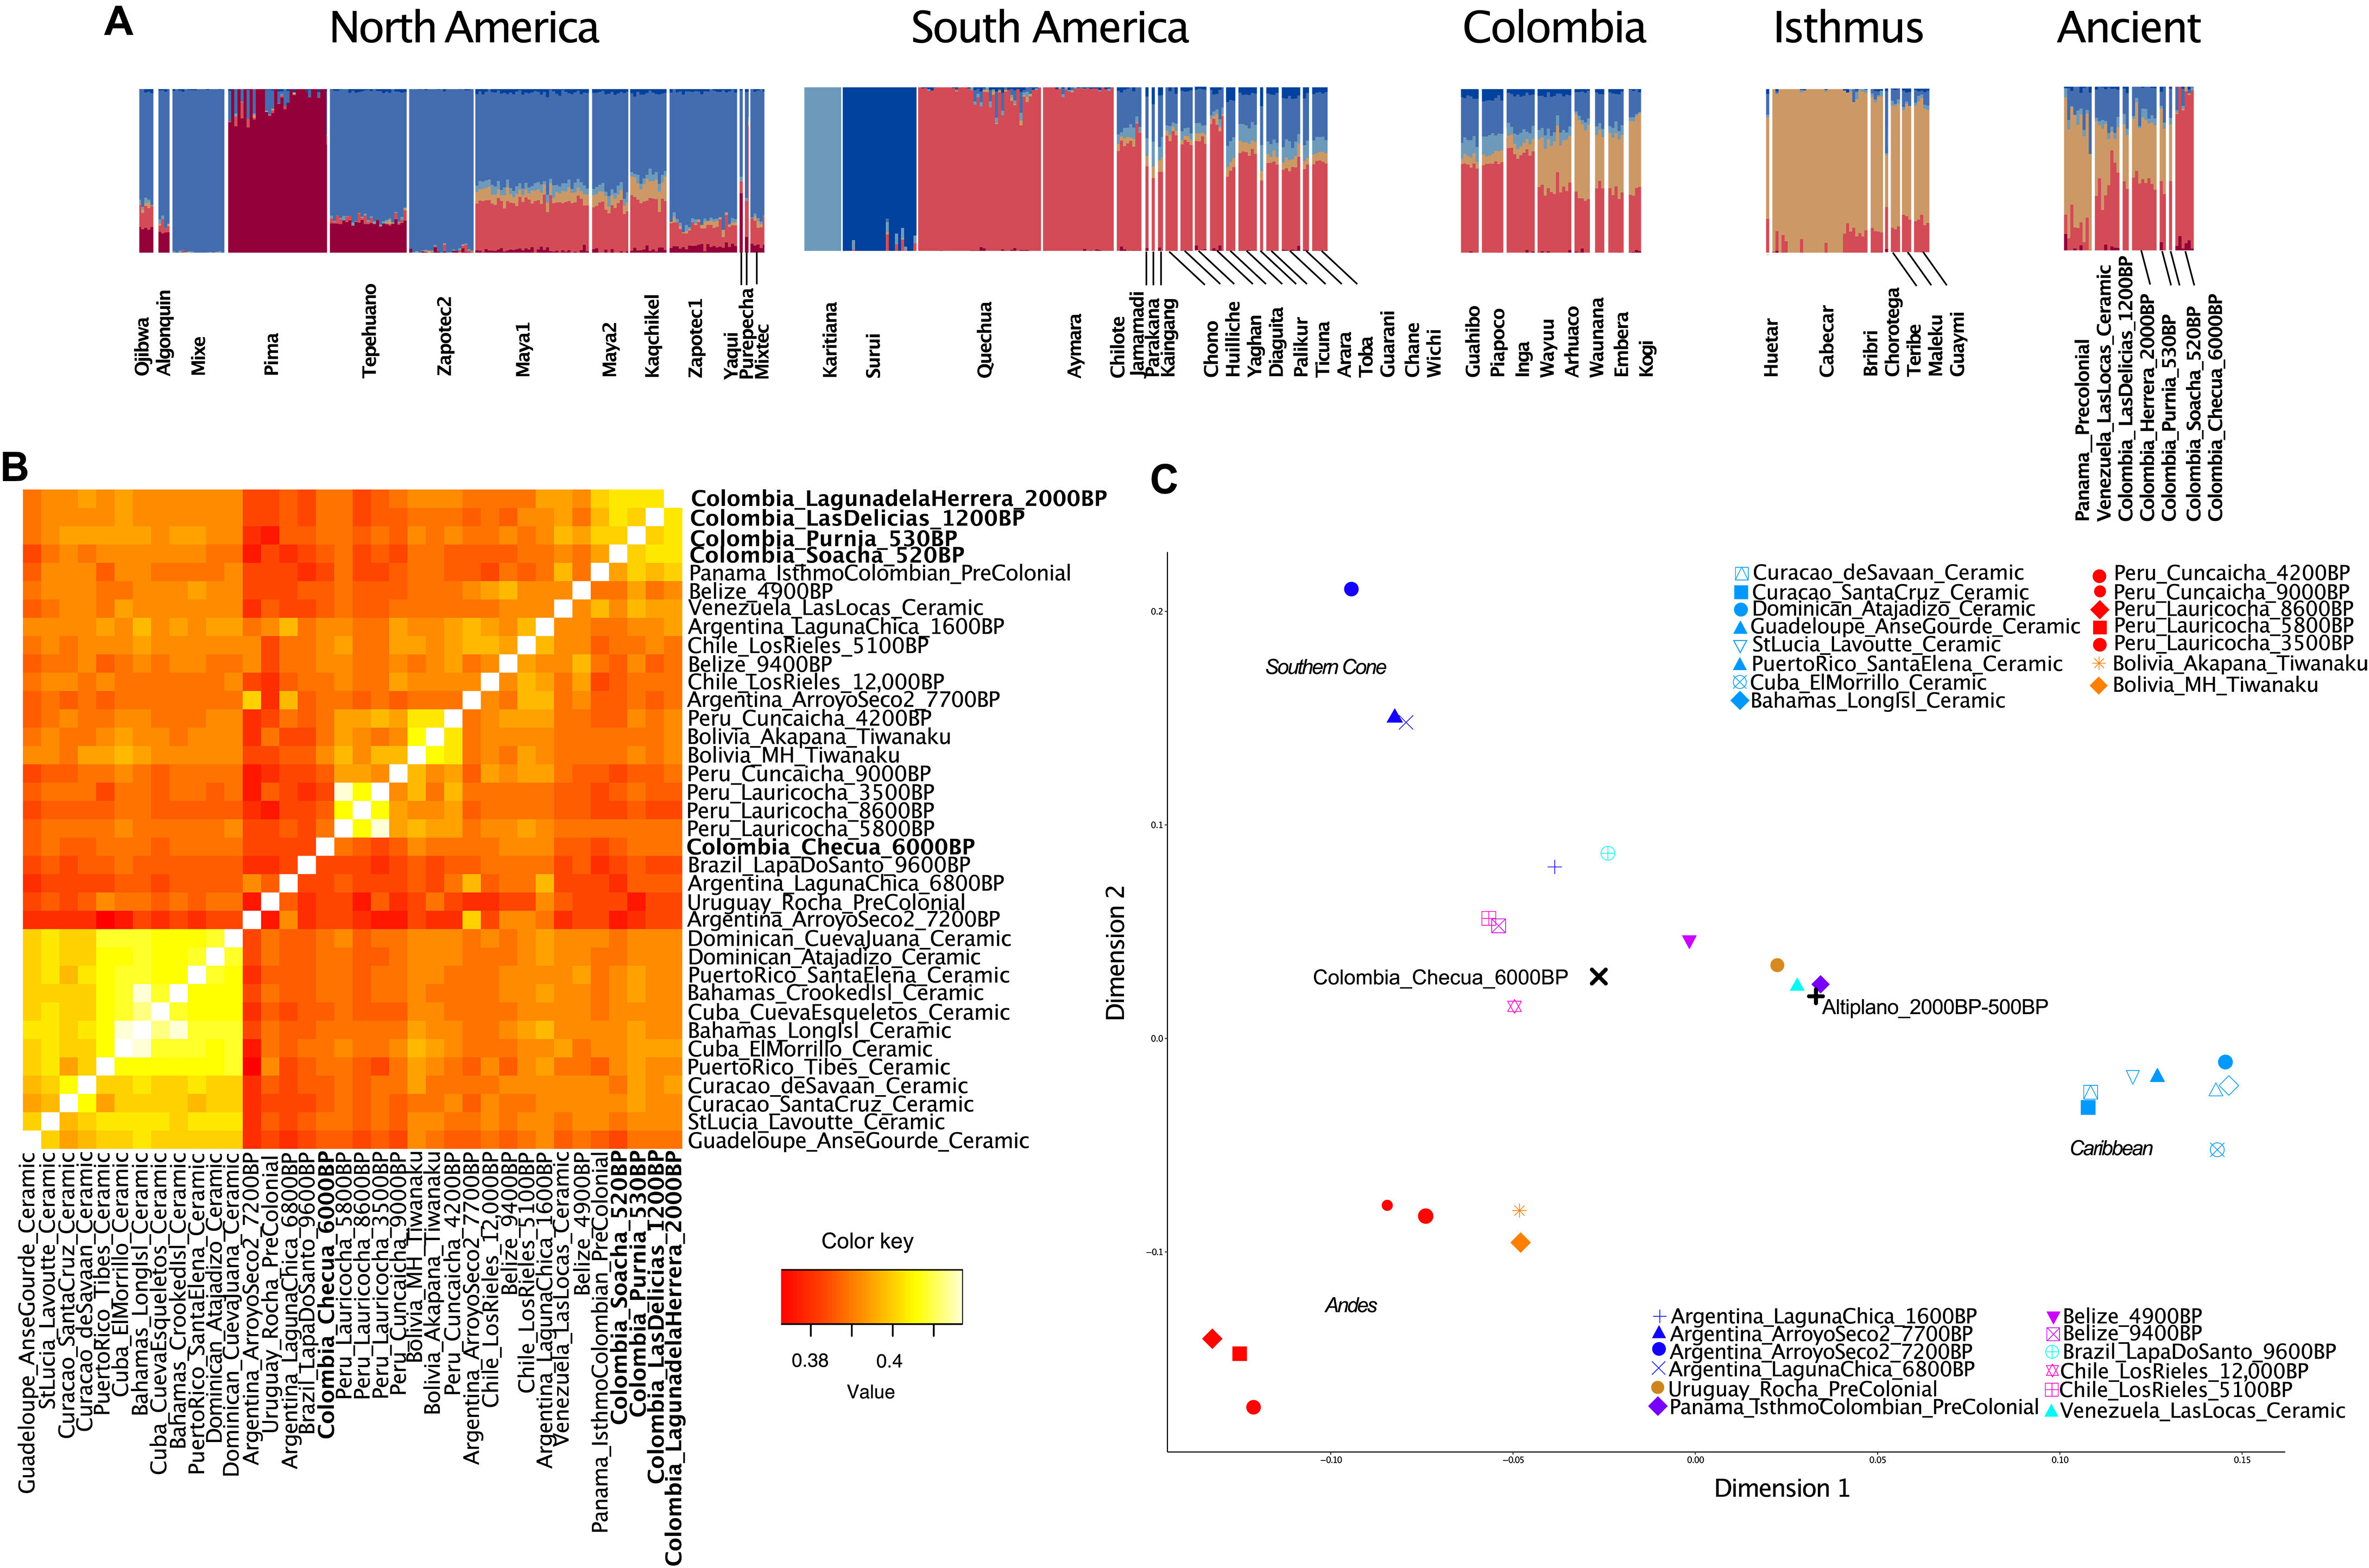
2000~500年前頃の間のアルティプラーノ個体群が経時的な遺伝的連続性の証拠を示すのかどうか評価するために、f統計に基づく一連の分が実行されました。まず、異なる中央アメリカ大陸および南アメリカ大陸祖先系統の代表的な古代人集団で外群f₃統計視覚図(heatmap)が計算されました。この分析から、ヘレラ期およびムイスカ期のアルティプラーノ個体群は高度な遺伝的類似性でクラスタ(まとまり)を形成する、と示されます。これはf₄統計およびqpWave分析によってさらに裏づけられ、すべてボゴタ高原のコロンビア_ラス・デリカス_1200年前とコロンビア_ソアチャ_520年前が共通の遺伝的祖先系統を有する、とのさらなる証拠を提供します。さらに、アルティプラーノのロス・クロス地域のコロンビア_プルニア_530年前集団は、本論文のボゴタ高原の2000年前頃以後の古代人のゲノム時間横断区と高度に類似しており、両地域間で遺伝に観察された遺伝的つながりが確証されます。まとめると、これらの調査結果は、ヘレラ期とムイスカ期との間の大きな文化的変化にも関わらず、少なくとも1500年間存続したアルティプラーノにおける大きな遺伝的連続性を明らかにします。
次に、少なくとも2000年前頃までにアルティプラーノに到達した遺伝的祖先系統の供給源を特徴づけることが試みられました。まず、これまでに中央アメリカ大陸および南アメリカ大陸で発見された遺伝的差異の主要な軸を表す人口集団を含めて、f₃統計に基づくMDS(multidimensional scaling、多次元尺度構成法)図が構築されました(図3C)。以前に示された高い遺伝的類似性のため、この分析については、アルティプラーノ_2000-500年前と呼ばれる単一集団に全ての2000年前頃以後の古代コロンビアの個体が組み合わされました。MDS図では、それぞれアンデス山脈とコーノ・スールと土器時代カリブ海地域の古代の個体群[8、44、45]によって表される、3遺伝的クラスタ(まとまり)が特定されます。コロンビア_チェクア_6000年前がMDS図の中央部に位置するのに対して、アルティプラーノ_2000-500年前集団はパナマの先スペイン期個体群およびベネズエラの土器関連個体群の両方に近く、ADMIXTURE分析と一致します。コロンビアの古代人と古代のアメリカ大陸先住民のゲノムとを比較する直接的なf₄統計は、2000年前頃以後のコロンビアの古代人および土器関連のベネズエラ古代人のパナマ古代人との顕著な類似性を確証します。
コロンビアとベネズエラとパナマの古代人の間の遺伝的関係を調べるために、古代人のデータが投影された南アメリカ大陸の中央部および北部の遺伝的多様性に焦点を当ててPCAが構築されました。本論文の調査結果から、コロンビアとベネズエラ両方の古代人はパナマの古代人と中央アメリカ大陸および南アメリカ大陸における他の以前に検出された祖先系統の中間に位置する、と論証されます。注目すべきことに、ベネズエラの1ヶ所の遺跡の土器時代関連個体群は、コロンビアの4ヶ所の遺跡の2000年前頃以後の古代の個体群よりも、PCA空間においてより広がっています。
TreeMix分析の実行によって、中央アメリカ大陸と南アメリカ大陸北部の古代人のゲノム間の分岐と混合のパターンがさらに調べられました。ベネズエラの土器関連個体群の以前に示された異質性のため、f₄統計を用いて、他の古代のアメリカ大陸先住民集団に対する特定の個体群の差異的な類似性について検証されました。これらの検証では、ベネズエラ_ラス・ロカス_土器時代_2(3個体)がベネズエラ_ラス・ロカス_土器時代_1(5個体)よりもパナマの古代信と有意により高い類似性を有している、と明らかになりました。TreeMixでは一貫したパターンが明らかになり、ベネズエラ_ラス・ロカス_土器時代_2はつねに2000年前頃以後のコロンビアの古代人集団よりもパナマの古代人の方と近い一方で、2000年前頃以後のコロンビアの古代人集団はつねにベネズエラ_ラス・ロカス_土器時代_1よりもパナマの古代人の方と近くなります。コロンビアの古代人集団は、パナマの古代人を除いて、ベネズエラの古代人集団のどれともクレード(単系統群)を形成しません。時間的に疎らな標本抽出のため、パナマ関連祖先系統が同じ頃にコロンビアとベネズエラに到達したのかどうか、推測できませんが、本論文の結果から、近隣のコロンビアとベネズエラの2ヶ国の土器関連個体群は異なる人口統計学的過程を経た、と示されます。
次に、コロンビアとベネズエラの古代人がパナマ関連祖先系統と他の供給源との間の混合勾配上に位置するのかどうか、f₄形式(古代の外群捕獲、X捕獲;アルティプラーノ_2000-500年前/ベネズエラ古代人、パナマ古代人ショットガン配列)およびf₄形式(古代の外群捕獲配列、Xショットガン配列;アルティプラーノ_2000-500年前/ベネズエラ古代人、パナマ古代人ショットガン配列)のf₄統計で検証されました。PCAとADMIXTUREの結果はそうした混合勾配の存在と一致するでしょうが、f₄統計は、ショットガン配列決定や標的濃縮など異なる配列決定実施要綱によったもたらされた偏りを考慮すると、有意な統計量を示しません。一つの可能性は、本論文の比較データセットには、パナマ関連祖先系統と混合し、2000年前頃以後のコロンビアの古代人集団生み出した供給源人口集団の適切な代理が欠けていることです。あるいは、侵入してきたパナマ関連祖先系統はアルティプラーノへの拡大中に他の遺伝的供給源と混合しなかったかもしれません。この想定では、一方の側のパナマの古代人ともう一方の側のコロンビアおよびベネズエラの古代人との間の遺伝的差異は、これらの系統の1もしくは複数における分岐後の遺伝的浮動の過程に起因するかもしれません。
●現代のアメリカ大陸先住民との遺伝的類似性
先行研究は、先スペイン期パナマの個体群とチブチャ語族話者、とくにコスタリカおよびパナマのチブチャ語族話者との間の高水準の遺伝的類似性を明らかにしました。本論文はまず、パナマの古代人とコロンビアの古代人が中央アメリカ大陸の現在のチブチャ語族話者と等しく関連しているのかどうか、0未満のf₄統計(ムブティ人、パナマ地峡現代人;パナマ古代人、コロンビア古代人)で調べました。予測されたように、パナマとコロンビアの間よりも、パナマとコスタリカの間の方で、より高水準の経時的なアレル(対立遺伝子)共有が見つかりました。この結果は、パナマの古代人がコロンビアの古代人との比較において現代のチブチャ語族話者で最大化される祖先系統構成要素をずっと高い割合で有している、とのADMIXTUREで観察されたパターンと一致します(図3A)。
次に、パナマの古代人とコロンビアの古代人との間のつながりがコロンビア地峡の現代の人口集団に及んでいるのかどうか、混合していない個体群もしくは非アメリカ大陸先住民祖先系統との近い過去の混合が隠された個体群を用いて、検証されました。f₃形式(ムブティ人、コロンビア古代人;現在のアメリカ大陸先住民)の外群f₃統計は、2000年前頃以後のコロンビアの古代人集団と中央アメリカ大陸のチブチャ語族話者人口集団との高度な類似性を示します(図4A)。一部がチブチャ語族言語も話すコロンビアのアメリカ大陸先住民集団よりも、コロンビア地峡の現在の人口集団で、より高水準の共有された遺伝的浮動が観察されます(図4A)。このパターンは2組のf₄統計で確証されます。0のf₄統計(ムブティ人、現代のアメリカ大陸先住民;コロンビア古代人1、コロンビア古代人2)では、コロンビア人集団のどれかとコロンビア地峡の内部もしくは外部の現代の人口集団との差異的な類似性の証拠はない、と示され、植民地化までの少なくとも2000年前頃以後のアルティプラーノにおける均質な遺伝的特性が確証されます。一方で、0を超えるf₄統計(ムブティ人、コロンビア古代人;現代のアメリカ大陸先住民、中央アメリカ大陸南部の現代人)では、カベカル人(Cabécar)など中央アメリカ大陸のチブチャ語族話者は、本論文のデータセットのどの他の現在の人口集団の場合よりも、2000年前頃以後のコロンビアの古代人と顕著により密接である、と示されます(図4B)。以下は本論文の図4です。

この調査結果は、コロンビア地峡のチブチャ語族関連人口集団をコロンビア北部集団に対して比較した場合でさえ、当てはまります。しかし、コロンビアの現代人集団は、2000年前頃以後のコロンビアの古代人と全員が等しく関連しているわけではありません。具体的には、f₄統計(ムブティ人、コロンビア古代人;コロンビア現代人1、コロンビア現代人2)で示されるように、コロンビア北部および西部の先住民集団は、コロンビアの他地域の先住民集団よりもコロンビアの古代人と高い類似性を有しています。これらコロンビア北部および西部の人口集団の一部はコギ(Kogi)語やアルアコ(Arhuaco)語のようなチブチャ語族言語を話しますが、他の人口集団は話さず、エンベラ(Embera)語やワウナナ(Waunana)語やワユ(Wayuu)語を話しており、2000年前頃以後のコロンビアの古代人との共有された遺伝的類似性は、現代人の遺伝子型データで以前に示されたように、チブチャ語族話者人口集団との地理的な近さに起因するかもしれません[23]。
遺伝的つながりは、金やトゥンガバ(tumbaga、金と銅の合金)の一部の反復模様の分布による事例で証明されているように、コロンビア地峡地域全体の広範な文化的接触に起因するかもしれません。さらに、考古学的証拠から、先コロンブス期には、チブチャ語族話者はコロンビアのより広範な地理的地域を占めており、それにはカウカ渓谷(Cauca Valley)シヌー(Sinú)地域が含まれ、そうした地域ではチョコアン語(Chocoan)の話者との長期の相互作用があった、と示唆されています。
●考察
この研究では、コロンビア地峡地域の南端を表しているアルティプラーノの、ほぼ6000年間の時間横断区にまたがる21個体のゲノム規模データが生成されました。本論文の調査結果は、南アメリカ大陸の移住過程における重要な地域である、この地域の人口史のより深い理解に寄与します。6000年前頃のアルティプラーノの狩猟採集民人口集団には、クローヴィス文化関連のアンジック1号のゲノムおよび古代カリフォルニアのチャネル諸島個体群と関連する遺伝的祖先系統が欠けており、この6000年前頃の狩猟採集民集団の、9000年前頃までに南アメリカ大陸の人々の祖先系統の主要な供給源になった南方アメリカ大陸先住民系統[8]との類似性が示唆されます。しかし、祖先系統の同じ波と関連しているアンデス山脈およびコーノ・スールの古代人のゲノムとは異なり、コロンビアの分析された先土器時代の個体群は、これまでに研究された中央アメリカ大陸および南アメリカ大陸のどの古代もしくは現代の人口集団とも明確な類似性を共有していません。したがって、コロンビア_チェクア_6000年前は、南アメリカ大陸全域で最初の入植期に複数の人口集団を生み出した拡散事象に由来する、以前には報告されていなかった独特な系統としてモデル化できます。
先土器時代とヘレラ期との間のこの文化的移行は、一見すると在来の遺伝的特性の完全な置換と関連しています。これは、形態計測研究と古代mtDNAの時間横断区によって示唆されているように、在来の狩猟採集民がその土地で発展した、とのモデルに異議を唱えます。代わりに、本論文は、6000年前頃以後ではあるものの2000年前頃以前に起きた、アルティプラーノにおける大きな遺伝的置換の証拠を提供します。この置換事象の機序と正確な時間規模は不確かなままなので、この置換事象を3800年前頃のトウモロコシ栽培の出現と直接的に関連づけることはできません。しかし、本論文のデータは、ヘレラ土器複合体と関連する土器の導入は人口拡散によって媒介された、との考古学的仮説を裏づけます。
本論文の結果から、アルティプラーノに侵入してきた遺伝的祖先系統は、中央アメリカ大陸の古代および現在のチブチャ語族話者人口集団と関連している、と示されます。これは、コロンビア地峡への逆移動ではなく、中央アメリカ大陸南部から南アメリカ大陸へのチブチャ語族話者関連の移住によって最も節約的に説明できます。別の研究では、中央アメリカ大陸南部からベリーズのマヤ地域への5600年前頃までとなる、チブチャ語族関連祖先系統の以前には知られていなかった南方から北方への拡大の証拠が見つかりました[49]。したがって、チブチャ語族と関連する中央アメリカ大陸人口集団を、北アメリカ大陸と南アメリカ大陸の祖先系統間の混合に由来するとモデル化するのではなく[23]、これらの結果は、中央アメリカ大陸南部にチブチャ語族関連祖先系統の起源があり、およびその後のメソアメリカと南アメリカ大陸の両方への2方向の遺伝子流動が続いたことと一致します。中央アメリカ大陸に元々の「チブチャ語族の故地」があった、とのこのモデルは、チブチャ語族話者の現在の人口集団に関するmtDNA研究だけではなく、コロンビア地峡地域がこのチブチャ語族内で最高の多様性を示す、と示唆する言語学的観察によっても裏づけられます。
考古学的観点からは、チブチャ語族関連祖先系統は、ヘレラ土器と関連する2000年前頃の個体群で初めて特定されます。さらに、以前に配列決定された2400年前頃のベネズエラの土器関連個体群も、チブチャ語族話者の中央アメリカ大陸人口集団との高い類似性を示します[44]。同様の祖先系統パターンと時間的枠組みにも関わらず、この2人口集団は単一の姉妹群を形成しないようです。これは、複数の異なるチブチャ語族言語の南アメリカ大陸への拡大を示唆する証拠と一致するかもしれませんが、この問題のさらなる解明には追加の研究が必要でしょう。
この地域の遺伝的景観を完全に作り変えたチブチャ語族関連祖先系統の到来後に、1500年以上にわたる(少なくとも2000~500年前頃)局所的人口集団の遺伝的特性における長期の遺伝的連続性の証拠が見つかります。遺伝的祖先系統における安定性には、ヘレラ期末とムイスカ期の開始が含まれます。これが示す想定では、チブチャ語族系統の言語を話す人口集団がムイスカ文化と通常は関連づけられる特徴の出現の前にアルティプラーノに定住しており、それが示すのは、この文化的移行が異なる遺伝的祖先系統組成を有する地域からの大規模な移住なしに起きたことです。さらに、そうした遺伝的連続性はムイスカ期内の異なる文化段階に及んでおり、スペインによる植民地化まで持続しました。植民地期の言語学的記録から、ムイスカ文化の人々は今では消滅したチブチャ語を話していた、と確証されました。本論文の調査結果は、中央アメリカ大陸のチブチャ語族話者との遺伝的つながりを確証するだけではなく、おそらくは記録されているムイスカ語を生み出したマグダラ語派(Magdalenic)の基底部に位置するチブチャ語族の祖語が、すでに先ムイスカ文化のヘレラ期にアルティプラーノで話されていたことも示唆します。
本論文のデータセットにおける先住民集団の代表性は確かに包括的ではありませんが、2000年前頃以後のコロンビアの古代人と現在の先住民集団との遺伝的類似性で観察されたパターンは、チブチャ語族話「群島」とも呼ばれる、スペイン植民地期におけるコロンビア地峡全域のチブチャ語族話者の人口集団の不均等な分布に関する問題を提起します。
一つの可能な説明は、この分布が、チブチャ語族の最初の分岐パターンによって示唆されるように、単一の拡大の波ではなく、中央アメリカ大陸から南アメリカ大陸北部のさまざまに場所への別々の拡散から所ヴした、というものです。しかし、最初の拡大はより広範で、その後でチブチャ語族話者の移住および混合事象によって断片化した可能性もあります。コロンビア北部のチブチャ語族に分類される人口集団は、中央アメリカ大陸南部の人々とよりも、2000年前頃以後のコロンビアの古代人の方と遺伝的類似性が顕著に減少していた、との観察は、南アメリカ大陸北部の遺伝的多様性の形成における人口集混合の役割を裏づけます。
本論文は、コロンビア地峡地域の複雑な人口史の理解を大きく深めますが、3点の主要な限界を強調します。第一に、本論文は古代アメリカ大陸先住民集団のゲノム規模捕獲データを報告しますが、124万SNP捕獲パネルにおける差異の大半は、アメリカ大陸先住民集団で固定されています。これは本論文の分析の解像度を制約しており、将来の試みでは、全ゲノム配列決定および/もしくはアメリカ大陸先住民固有のSNPパネルの標的濃縮を行ない、統計的検出力と分析の複雑さを高めるべきです。第二に、アルティプラーノにおけるより密なゲノム時間横断区は、チブチャ語族関連祖先系統の到来の時期を絞り込むことができ、まだ特徴づけられていない祖先系統供給源との混合を特定できるかもしれません。第三に、本論文は地域的に焦点を当てているので、報告された人口変容が、チブチャ語族の記録された証拠がある地域とない地域の両方について、アルティプラーノ以外の他の地域にも影響を及ぼしたのかどうか、評価することが重要です。コロンビア西部やベネズエラ西部やエクアドルなど、古代ゲノミクスでまだ分析されていない北アンデス山脈沿いの近隣地域からの古代ゲノムデータが、南アメリカ大陸へのヒトの移動の時期と祖先系統供給源をより深く明らかにするのに重要でしょう。
参考文献:
Krettek KL. et al.(2025): A 6000-year-long genomic transect from the Bogotá Altiplano reveals multiple genetic shifts in the demographic history of Colombia. Science Advances, 11, 22, eads6284.
https://doi.org/10.1126/sciadv.ads6284
[1]Raghavan M. et al.(2015): Genomic evidence for the Pleistocene and recent population history of Native Americans. Science, 349, 6250, aab3884.
https://doi.org/10.1126/science.aab3884
関連記事
[2]Moreno-Mayar JV. et al.(2018): Terminal Pleistocene Alaskan genome reveals first founding population of Native Americans. Nature, 553, 7687, 203–207.
https://doi.org/10.1038/nature25173
関連記事
[3]Sikora M. et al.(2019): The population history of northeastern Siberia since the Pleistocene. Nature, 570, 7760, 182–188.
https://doi.org/10.1038/s41586-019-1279-z
関連記事
[4]Yu H. et al.(2020): Paleolithic to Bronze Age Siberians Reveal Connections with First Americans and across Eurasia. Cell, 181, 6, 1232–1245.E20.
https://doi.org/10.1016/j.cell.2020.04.037
関連記事
[5]Moreno-Mayar JV. et al.(2018): Early human dispersals within the Americas. Science, 362, 6419, eaav2621.
https://doi.org/10.1126/science.aav2621
関連記事
[6]Scheib CL. et al.(2018): Ancient human parallel lineages within North America contributed to a coastal expansion. Science, 360, 6392, 1024-1027.
https://doi.org/10.1126/science.aar6851
関連記事
[7]Rasmussen M. et al.(2014): The genome of a Late Pleistocene human from a Clovis burial site in western Montana. Nature, 506, 7487, 225–229.
https://doi.org/10.1038/nature13025
関連記事
[8]Posth C. et al.(2018): Reconstructing the Deep Population History of Central and South America. Cell, 175, 5, 1185–1197.E22.
https://doi.org/10.1016/j.cell.2018.10.027
関連記事>
[9]Nakatsuka N. et al.(2023): Genetic continuity and change among the Indigenous peoples of California. Nature, 624, 7990, 122–129.
https://doi.org/10.1038/s41586-023-06771-5
関連記事>
[10]Ferraz T. et al.(2023): Genomic history of coastal societies from eastern South America. Nature Ecology & Evolution, 7, 8, 1315–1330.
https://doi.org/10.1038/s41559-023-02114-9
関連記事>
[11]Nakatsuka N. et al.(2020): A Paleogenomic Reconstruction of the Deep Population History of the Andes. Cell, 181, 5, 1131–1145.E21.
https://doi.org/10.1016/j.cell.2020.04.015
関連記事>
[23]Reich D. et al.(2012): Reconstructing Native American population history. Nature, 488, 7411, 370–374.
https://doi.org/10.1038/nature11258
関連記事>
[37]Mallick S. et al.(2016): The Simons Genome Diversity Project: 300 genomes from 142 diverse populations. Nature, 538, 7624, 201–206.
https://doi.org/10.1038/nature18964
関連記事>
[41]Ringbauer H, Novembre J, and Steinrücken M.(2021): Parental relatedness through time revealed by runs of homozygosity in ancient DNA. Nature Communications, 12, 5425.
https://doi.org/10.1038/s41467-021-25289-w
関連記事>
[44]Fernandes DM. et al.(2021): A genetic history of the pre-contact Caribbean. Nature, 590, 7844, 103–110.
https://doi.org/10.1038/s41586-020-03053-2
関連記事>
[45]Nägele K. et al.(2020): Genomic insights into the early peopling of the Caribbean. Science, 369, 6502, 456–460.
https://doi.org/10.1126/science.aba8697
関連記事
[49]Kennett DJ. et al.(2022): South-to-north migration preceded the advent of intensive farming in the Maya region. Nature Communications, 13, 1530.
https://doi.org/10.1038/s41467-022-29158-y
関連記事
本論文で主要な分析対象となる遺跡は以下の通りです。コロンビアでは、チェクア(Checua)遺跡、プルニア(Purnia)遺跡、ラグナ・デ・ラ・ヘレラ(Laguna de la Herrera)遺跡、ソアチャ(Soacha)遺跡、ラス・デリカス(Las Delicias)遺跡。アメリカ合衆国では、モンタナ州西部のアンジック(Anzick)遺跡。ベネズエラでは、ラス・ロカス(Las Locas)遺跡。ペルーでは、クンカイチャ(Cuncaicha)遺跡とラウリコチャ(Lauricocha)遺跡、チリのロス・リーレス(Los Rieles)遺跡。
●要約
アメリカ大陸先住民集団に関する遺伝学的研究は、アメリカ大陸の人口統計学的歴史に関する理解を一変させました。しかし、これまで古代ゲノムで調べられてこなかった地域であるコロンビアは、南アメリカ大陸への入口です。本論文は、6000~500年前頃の間のコロンビアのボゴタ・アルティプラーノの21個体のゲノム規模データを報告します。先土器時代の狩猟採集民は、最初の南アメリカ大陸への拡散に由来する、以前には知られていなかった基底部系統を表している、と明らかになります。これらの狩猟採集民は古代の北アメリカ大陸集団との差異的な類似性を有しておらず、古代もしくは現在の南アメリカ大陸人口集団へ遺伝的に寄与もしませんでした。2000年前頃までに、この在来の遺伝的祖先系統はヘレラ土器複合体と関連する中央アメリカ大陸から到来した人口集団によって置換され、それは、大きな文化的変化にも関わらずムイスカ期まで存続しています。これら古代のアルティプラーノ個体群は、コロンビアの先住民とよりもパナマ地峡のチブチャ語族話者の方と高い類似性を示しており、その後の拡散事象によるチブチャ語族関連祖先系統の希釈が示唆されます。
●研究史
古代および現在の先住民集団に関する遺伝学的研究は、アメリカ大陸の定住の理解にかなり貢献してきました。それらの研究では、北極圏以外のアメリカ大陸先住民は、アジア東部とシベリアの古代人集団間の2万年以上前のアジア北東部のどこかでの遺伝的混合に由来する、と明らかになりました[1~4]。北アメリカ大陸における最初の到来後の16000年前頃に、この遺伝的祖先系統は北方アメリカ大陸先住民と南方アメリカ大陸先住民として知られる2系統に分岐します[1、5、6]。北方アメリカ大陸先住民祖先系統はおもに北アメリカ大陸の古代および現在の人口集団に限られていますが、南方アメリカ大陸先住民系統は南方へとさらに拡大し、古代および現在の南アメリカ大陸先住民の主要な祖先系統構成要素となっています。
南方アメリカ大陸先住民祖先系統は北アメリカ大陸内で少なくとも3下位系統へと多様化し、つまり、アメリカ合衆国のモンタナ州西部のクローヴィス(Clovis)文化関連のアンジック1号個体と関連する系統、カリフォルニア州のチャネル諸島の古代の個体群で見られる系統、中央アメリカ大陸および南アメリカ大陸の現代人の主要な祖先系統供給源を表している系統です[7~9]。これら各下位系統は、南アメリカ大陸古代人の遺伝子プールに祖先系統の波を提供しました。チリの12000年前頃の個体とブラジルの10000年前頃の個体は遺伝的に、1万年前頃以降の南アメリカ大陸沿岸やコーノ・スール(Southern Cone、南回帰線以南の南アメリカ大陸の南端部)やアンデス山脈の個体群とよりも、アンジック1号の方と関連しています[8、10]。さらにカリフォルニアのチャネル諸島個体群の祖先系統は4200年前頃までアンデス山脈中央部で見られ、その後この地域に広く拡大するようになりました[8、11]。しかし、南アメリカ大陸へのこれらの人口移動の正確な時期は、これまでほぼ未解決のままです。
コロンビア地峡地域はホンジュラスの沿岸からコロンビア北部のアンデス山脈まで広がっており、アメリカ大陸の移住の理解に重要です。コロンビア地峡地域は、南北のアメリカ大陸間の陸橋であるだけではなく、メソアメリカとアマゾンとアンデス山脈の3ヶ所の主要な分か地域の中心に位置しています。ヨーロッパ人との接触時に、コロンビア地峡地域に居住していたのは人口集団の複雑な混在で、それはおもにチブチャ語族とチョコアン語(Chocoan)とカリブ(Carib)語の話者でした。それらの人口集団のうち、チブチャ語族話者は人口統計学と文化的多様性と陸上での分布の観点ではこの地域において最も広く拡大していました。チブチャ語族は複数の高度に異なる下位系統のある語族で、その多くはコロンビア地峡地域のさまざまな領域で現在も依然として話されています。チブチャ語族祖語の故地および古さとチブチャ語族話者の祖先は、依然として議論の対象です。語彙と文法の観点での語族内の高度な差異から、チブチャ語族は古く、数千年前に多様化し始めた、と示唆されています。しかし、最初の多様化の場所は、依然として不確かです。ほとんどの学者は、このチブチャ語族祖語は、チブチャ語族の最も多い数が現在話されている中央アメリカ大陸南部で多様化し始めた、と考えています。しかし、一部の証拠から、チブチャ語族祖語は南アメリカ大陸に起源があり、その後でずっと遅い年代に中央アメリカ大陸で多様化した、と示唆されています。古代および現在のコロンビア地峡の先住民集団の遺伝学的研究は、チブチャ語族話者と主に関連する独特な祖先系統構成要素を明らかにしました。しかし、ミトコンドリアDNA(mtDNA)研究が中央アメリカ大陸からコロンビアおよびベネズエラへのチブチャ語族関連祖先系統の移動を示唆したのに対して、ゲノム規模研究は逆の南方から北方への人口移動を支持しました[23]。後者のモデルによると、中央アメリカ大陸のチブチャ語族話者はこの地域の最初の移住者ではなく、南アメリカ大陸から中央アメリカ大陸へのより新しい逆移住に由来します[23]。
コロンビア地峡地域の最南端は、アルティプラーノ・クンディボヤケンセ(Altiplano Cundiboyacense、以下アルティプラーノ)です。コロンビアのアンデス山系における平均標高2600mのこの高原には、後期更新世から古代の狩猟採集民集団が暮らしていました。先土器時代の前期および中期完新世段階(11500~4000年前頃)には、アルティプラーノの人口集団は複数の文化変容を経ており、最も顕著なりは、定住の増加と、狩猟採集民生計から園耕慣行および森林管理の導入への移行です。しかし、トウモロコシ栽培の最初の明確な証拠が出現したのは、後期更新世初期の3800年前頃以降でした。
その後の形成期(3000~1000年前頃)には、独特な種類の土器がアルティプラーノに出現し、これはヘレラ土器複合体と呼ばれており、文献ではヘレラ期(2800~1200年前頃)としても知られています。アルティプラーノのヘレラ関連集団が同じ場所での在来狩猟採集民の発展に由来したのか、それともこの地域への人口拡散の結果だったのかどうか、依然として激しく議論されています。1200年前頃には、ムイスカ期として知られる文化段階がアルティプラーノで始まり、16世紀半ばのスペイン植民地体制まで続きました。ほとんどの利用可能な証拠は、先行するヘレラ期との人口連続性を示唆しています。ムイスカ期は、人口増加や農耕および交易の発展や社会的および政治的複雑化の相対的に連続的な過程によって特徴づけられます。これらの要因はムイスカ文化の形成に大きな役割を果たし、ヨーロッパ人の植民地化までアルティプラーノを支配したチブチャ語族話者人口集団が生じました。
いくつかの研究は古代のコロンビア個体群からのmtDNAデータを報告しましたが、この地域のゲノム規模データはこれまで依然として完全に欠けています。この研究では、アルティプラーノの2ヶ所の地域、つまりボゴタ(Bogotá)高原とロス・クロス(Los Curos)の古代人21個体のmtDNAおよびゲノム規模データが生成されました。本論文のデータは6000~500年前頃の間の時間横断区にまたがっており、以下の4点の重要な問題の調査の機会を提供します。それは、(1)アルティプラーノの先土器時代個体群はどの南方アメリカ大陸先住民の遺伝的祖先系統に由来しますか?(2)ヘレラ期およびムイスカ期と関連する文化的変容には移住および人口統計学的変化が伴っていましたか?(3)チブチャ語族話者で観察される遺伝的祖先系統は、アルティプラーノの古代の個体群の遺伝的祖先系統とどのように関連していますか?(4)生成された古代ゲノムとコロンビアおよび近隣地域の現在の先住民共同体の既存のゲノムデータとの間の遺伝的関係は、どのようなものですか?
●倫理声明
本論文は、先スペイン期個体群に関する古代DNA研究が、現在の先住民共同体に重大な影響を及ぼす可能性を認識しています。したがって、ボゴタ高原に位置するスバ(Suba)およびレスグアルド・デ・スバ(Resguardo de Suba)のムイスカ人の代表であるグアルディア先住民ムイスカ(Guardia Indígena Muisca)との接触を取り、研究結果について議論し、地域の歴史と価値と伝統に敬意を払う形で研究結果を提示しました。この試みは刊行物以外にも、同等の共同宣伝や範囲外の活動に及びます。共同体の構成員との会議および地元の考古学者と人類学者への発表の間に、古代の個体群の遺伝的祖先系統に関する調査結果は追加の分析および/もしくはデータでさらに改良できる、と強調されました。さらに、遺伝学的結果は独立しており、文化的帰属意識の概念と融合されるべきではない、と強調されました。コロンビアの先住民共同体と関連する問題に取り組む科学者として、共同体に基づく知識の豊かさに敬意を払い、評価します。
●データセットと古代DNAの信頼性
アルティプラーノの5ヶ所の遺跡から、約5500年間の古代ゲノム時間横断区にまたがるデータが報告されます(図1A)。生成されたデータセットに含まれるのは、先土器時代の狩猟採集民7個体(コロンビア_チェクア_6000年前)、ヘレラ期の9個体(コロンビア_ラグナ・デ・ラ・ヘレラ_2000年前)、全員ボゴタ高原のムイスカ文化の初期および最終段階の両方と関連する3個体(コロンビア_ラス・デリカス_1200年前、コロンビア_ソアチャ_520年前)、グアネ(Guane)人口集団と関連するロス・クロス地域のさらに北方の2個体(コロンビア_プルニア_530年前)です。以下は本論文の図1です。
これらのデータを得るために、側頭骨の錐体部と歯からDNAが抽出され、二本鎖遺伝的ライブラリが生成されて、完全なmtDNAと124万ゲノム規模SNP(Single Nucleotide Polymorphism、一塩基多型)の標的一式(124万SNP)の両方でDNAが捕獲されました。イルミナ(Illumina)社の構築基盤でライブラリが配列決定され、177102~912488ヶ所の間のSNP網羅率が得られました。mtDNAとX染色体の汚染推定値を通じて古代DNAの信頼性がさらに評価され、すべての事例でそれぞれ4%と5%未満でした。生成された古代人のゲノム規模データは、世界中の人口集団の124万SNP[37]上の差異で構築された主成分分析(principal component analysis、略してPCA)に投影されました。全個体は現代のアメリカ大陸先住民の予測される差異内に収まり、非アメリカ大陸先住民の祖先系統での実質的な汚染はないことがさらに確証されました。
●片親性遺伝標識と人口構造
遺伝学的性別決定によって、本論文のデータセットにおいて女性10個体と男性11個体の存在が明らかになり、男性11個体は全員、Y染色体ハプログループ(YHg)Q1b1aおよびその下位単系統群に属しています。Q1b1aはアメリカ大陸先住民において優勢なYHgで、本論文のデータはコロンビアの古代人内の高頻度を確証します。現代のコロンビアの先住民において最も一般的なmtDNAハプログループ(mtHg)はA2とB2とC1で、D4h3aはかなりの低頻度です。この一般的な傾向は本論文の古代人の標本一式で確証され、最高頻度はmtHg-B2dで、それに続くのがA2とC1である一方で、mtHg-D1は1個体のみでした(図1B)。mtHg-A2の最も高い割合は、同じ遺跡のより古い個体群で以前に示されたように、コロンビア_チェクア_6000年前集団で見られます。
同祖対立遺伝子(identity-by-descent、略してIBD)状態と同型接合連続領域(runs of homozygosity、略してROH)を用いて[41]、全個体間の親族関係や遠い近縁性と近親交配水準が推定されました。前者が個体間の密接な近親関係(最大3親等まで)を説明するのに対して、IBDとROHは共有している祖先や近親婚や有効人口規模についての情報をもたらします。コロンビア_チェクア_6000年前において、4組の2親等および3親等の関係が検出されました。チェクア遺跡で配列決定された7個体のうち4個体は男性で、親族関係にある個体は同じYHgを共有していましたが、mtHgは共有していませんでした。コロンビア_ラグナ・デ・ラ・ヘレラ_2000年前の分析された個体は親族関係が少なく、1組のみが親子関係(FORM006とFORM004)で、2親等の関係(FORM004とFORM008)が別にありました。さらに、近親交配パターンがつねに行なわれていた証拠は見つからず、男性個体間の長いIBD断片り共有は稀です。4 cM(センチモルガン)以上のROHが全個体に存在し、最高頻度はコロンビア_チェクア_6000年前で見られました。ROHの分布は、コロンビア_チェクア_6000年前の有効人口規模がその後のコロンビアの古代人集団よりも3~8倍小さかったことを示唆しています。これは、アルティプラーノの狩猟採集民共同体内の小さな人口規模と、それに続くヘレラ期とムイスカ期における急激な人口増加との考古学的記述と一致しています。その後の集団遺伝学的分析については、1親等および2親等の親族を除外し、遺伝的外れ値が存在しないことを確証した後で、年代と考古学的遺跡に基づいて個体は集団にまとめられました。最後に、これらのデータはアメリカ大陸の利用可能な古代および現在の個体群と組み合わされました。
●先土器時代狩猟採集民は以前には知られていなかった基底部系統に由来します
アルティプラーノの狩猟採集民が南方アメリカ大陸先住民祖先系統のどの特定の祖先系統の分枝に由来するのか判断するために、一連のf₄統計が用いられました。チリ_ロス・リーレス_12000年前が南アメリカ大陸におけるアンジック1号祖先系統の最大で、ペルー_クンカイチャ_4200年前が最高の割合のカリフォルニアのチャネル諸島祖先系統の個体群の一つであり、ペルー_ラウリコチャ_8600年前がこれら2祖先系統のどちらも示さないことを考慮して、これらの分析は設計されました。コロンビア_チェクア_6000年前がペルー_ラウリコチャ_8600年前よりもアンジック1号との高い遺伝的類似性を示さない一方で、チリ_ロス・リーレス_12000年前はコロンビア_チェクア_6000年前よりもアンジック1号と密接に関連している、と分かり、アルティプラーノの分析された狩猟採集民における有意なアンジック1号関連祖先系統の欠如が示唆されます。同様にf4統計では、コロンビア_チェクア_6000年前は古代カリフォルニアのチャネル諸島個体群明確な類似性を有していない、と明らかになります(図2A)。以下は本論文の図2です。
本論文で組み合わされた調査結果から、コロンビア_チェクア_6000年前は南アメリカ大陸へのアンジック1号関連もしくはカリフォルニアのチャネル諸島個体群関連の拡大に属しておらず、南アメリカ大陸の祖先系統の主要な供給源を表す系統[8]に由来することと一致する、と示されます。この系統は、少なくとも9000年前頃から、南アメリカ大陸の複数の地域において現在の個体群にまで長期の遺伝的連続性を有している、と示されました[8]。したがって、コロンビア_チェクア_6000年前が南アメリカ大陸の古代および現在の人口集団と差異的な類似性を示すのかどうか、f₃形式(ムブティ人、古代/現代のアメリカ大陸先住民;コロンビア_チェクア_6000年前)の外群f₃統計で検証されました。この分析から、コロンビア_チェクア_6000年前は北アメリカ大陸よりも中央アメリカ大陸および南アメリカ大陸の人口集団の方と多くの遺伝的浮動を共有しているものの、中央アメリカ大陸および南アメリカ大陸のどの人口集団と共有する特定のアレルを示さない(図2B)、と明らかになり、これはコロンビア_チェクア_6000年前が深く分岐した南アメリカ大陸系統に由来することと一致します。古代の狩猟採集民集団と本論文のデータセットで利用可能な古代もしくは現在のアメリカ大陸先住民個体群との間の遠い類似性の可能性について検証する、f₄形式(ムブティ人、コロンビア_チェクア_6000年前;古代/現代のアメリカ大陸先住民、古代/現代のアメリカ大陸先住民)のf₄統計の一式で、この仮定が形式的に調べられました。外群f₃統計で観察されたように、有意な類似性は中央アメリカ大陸および南アメリカ大陸個体群が北アメリカ大陸個体群と比較された場合にのみ観察されます。代わりにf₄統計は、古代と現代の中央アメリカ大陸および南アメリカ大陸の人口集団間の比較でそれぞれゼロと一致すると分かりました。
まとめると、これらの結果は、事実上ほんどの南アメリカ大陸先住民に対する外群としてのコロンビア_チェクア_6000年前の位置づけを示唆しています。形式的にこの配置を検証するために、アメリカ大陸の入植史における主要な人口統計学的事象[8]を要約するqpGraph系統樹がモデル化されました。混合図の可能性のある場所にコロンビア_チェクア_6000年前を位置づけると、この集団を中央アメリカ大陸および南アメリカ大陸人口集団の最初の拡散[5、8]に直接的に由来する以前には特徴づけられていない系統としてモデル化する場合のみ、統計的に堅牢な適合が得られました。
最後に、本論文のアルティプラーノの2000年前頃以後の古代人のゲノムデータが分析され、可能性のある局所的な遺伝的連続性の存在が調べられました。f₄統計(ムブティ人、コロンビア_チェクア_6000年前;コロンビア古代人、古代/現代のアメリカ大陸先住民)では、コロンビア_チェクア_6000年前はアルティプラーノのその後のすべての古代人集団と等しく遠いものの、この集団が本論文のデータセットの他のあらゆる南アメリカ大陸人口集団とよりもその後のコロンビアの古代人の方と密接に関連しているわけでもない、と示すことができます。全体的に、実行された分析は6000年前頃と2000年前頃の間のアルティプラーノにおける大きな遺伝的置換の堅牢な証拠を提供します。
●少なくとも2000年前頃までに起きたアルティプラーノにおける遺伝的置換
アルティプラーノの配列決定されたすべての古代の個体遺伝的組成に関する概要を得るために、より広範な地域の他の古代人集団および現在のアメリカ大陸先住民との比較で、非先住民祖先系統が示されていないか隠されている個体のみを含めて、教室無ADMIXTURE分析が実行されました(図3A)。この解析の結果、コロンビア_チェクア_6000年前の遺伝的特性はその後のすべてのコロンビアの古代人とは大きく異なっている、と確証されます。次に、2000~500年前頃の間のアルティプラーノ個体群はひじょうに類似した遺伝的組成を示します。コロンビア_チェクア_6000年前でも見られる祖先系統構成要素に加えて、これらのより新しい個体群は1400~600年前頃の間の年代のパナマの古代の個体群において大量に見られる祖先系統を高い割合で有しています。同様の祖先系統特性は2400年前頃のベネズエラの土器関連個体群でも観察されますが[44]、遺跡内の変異性はより大きくなっています。以下は本論文の図3です。
2000~500年前頃の間のアルティプラーノ個体群が経時的な遺伝的連続性の証拠を示すのかどうか評価するために、f統計に基づく一連の分が実行されました。まず、異なる中央アメリカ大陸および南アメリカ大陸祖先系統の代表的な古代人集団で外群f₃統計視覚図(heatmap)が計算されました。この分析から、ヘレラ期およびムイスカ期のアルティプラーノ個体群は高度な遺伝的類似性でクラスタ(まとまり)を形成する、と示されます。これはf₄統計およびqpWave分析によってさらに裏づけられ、すべてボゴタ高原のコロンビア_ラス・デリカス_1200年前とコロンビア_ソアチャ_520年前が共通の遺伝的祖先系統を有する、とのさらなる証拠を提供します。さらに、アルティプラーノのロス・クロス地域のコロンビア_プルニア_530年前集団は、本論文のボゴタ高原の2000年前頃以後の古代人のゲノム時間横断区と高度に類似しており、両地域間で遺伝に観察された遺伝的つながりが確証されます。まとめると、これらの調査結果は、ヘレラ期とムイスカ期との間の大きな文化的変化にも関わらず、少なくとも1500年間存続したアルティプラーノにおける大きな遺伝的連続性を明らかにします。
次に、少なくとも2000年前頃までにアルティプラーノに到達した遺伝的祖先系統の供給源を特徴づけることが試みられました。まず、これまでに中央アメリカ大陸および南アメリカ大陸で発見された遺伝的差異の主要な軸を表す人口集団を含めて、f₃統計に基づくMDS(multidimensional scaling、多次元尺度構成法)図が構築されました(図3C)。以前に示された高い遺伝的類似性のため、この分析については、アルティプラーノ_2000-500年前と呼ばれる単一集団に全ての2000年前頃以後の古代コロンビアの個体が組み合わされました。MDS図では、それぞれアンデス山脈とコーノ・スールと土器時代カリブ海地域の古代の個体群[8、44、45]によって表される、3遺伝的クラスタ(まとまり)が特定されます。コロンビア_チェクア_6000年前がMDS図の中央部に位置するのに対して、アルティプラーノ_2000-500年前集団はパナマの先スペイン期個体群およびベネズエラの土器関連個体群の両方に近く、ADMIXTURE分析と一致します。コロンビアの古代人と古代のアメリカ大陸先住民のゲノムとを比較する直接的なf₄統計は、2000年前頃以後のコロンビアの古代人および土器関連のベネズエラ古代人のパナマ古代人との顕著な類似性を確証します。
コロンビアとベネズエラとパナマの古代人の間の遺伝的関係を調べるために、古代人のデータが投影された南アメリカ大陸の中央部および北部の遺伝的多様性に焦点を当ててPCAが構築されました。本論文の調査結果から、コロンビアとベネズエラ両方の古代人はパナマの古代人と中央アメリカ大陸および南アメリカ大陸における他の以前に検出された祖先系統の中間に位置する、と論証されます。注目すべきことに、ベネズエラの1ヶ所の遺跡の土器時代関連個体群は、コロンビアの4ヶ所の遺跡の2000年前頃以後の古代の個体群よりも、PCA空間においてより広がっています。
TreeMix分析の実行によって、中央アメリカ大陸と南アメリカ大陸北部の古代人のゲノム間の分岐と混合のパターンがさらに調べられました。ベネズエラの土器関連個体群の以前に示された異質性のため、f₄統計を用いて、他の古代のアメリカ大陸先住民集団に対する特定の個体群の差異的な類似性について検証されました。これらの検証では、ベネズエラ_ラス・ロカス_土器時代_2(3個体)がベネズエラ_ラス・ロカス_土器時代_1(5個体)よりもパナマの古代信と有意により高い類似性を有している、と明らかになりました。TreeMixでは一貫したパターンが明らかになり、ベネズエラ_ラス・ロカス_土器時代_2はつねに2000年前頃以後のコロンビアの古代人集団よりもパナマの古代人の方と近い一方で、2000年前頃以後のコロンビアの古代人集団はつねにベネズエラ_ラス・ロカス_土器時代_1よりもパナマの古代人の方と近くなります。コロンビアの古代人集団は、パナマの古代人を除いて、ベネズエラの古代人集団のどれともクレード(単系統群)を形成しません。時間的に疎らな標本抽出のため、パナマ関連祖先系統が同じ頃にコロンビアとベネズエラに到達したのかどうか、推測できませんが、本論文の結果から、近隣のコロンビアとベネズエラの2ヶ国の土器関連個体群は異なる人口統計学的過程を経た、と示されます。
次に、コロンビアとベネズエラの古代人がパナマ関連祖先系統と他の供給源との間の混合勾配上に位置するのかどうか、f₄形式(古代の外群捕獲、X捕獲;アルティプラーノ_2000-500年前/ベネズエラ古代人、パナマ古代人ショットガン配列)およびf₄形式(古代の外群捕獲配列、Xショットガン配列;アルティプラーノ_2000-500年前/ベネズエラ古代人、パナマ古代人ショットガン配列)のf₄統計で検証されました。PCAとADMIXTUREの結果はそうした混合勾配の存在と一致するでしょうが、f₄統計は、ショットガン配列決定や標的濃縮など異なる配列決定実施要綱によったもたらされた偏りを考慮すると、有意な統計量を示しません。一つの可能性は、本論文の比較データセットには、パナマ関連祖先系統と混合し、2000年前頃以後のコロンビアの古代人集団生み出した供給源人口集団の適切な代理が欠けていることです。あるいは、侵入してきたパナマ関連祖先系統はアルティプラーノへの拡大中に他の遺伝的供給源と混合しなかったかもしれません。この想定では、一方の側のパナマの古代人ともう一方の側のコロンビアおよびベネズエラの古代人との間の遺伝的差異は、これらの系統の1もしくは複数における分岐後の遺伝的浮動の過程に起因するかもしれません。
●現代のアメリカ大陸先住民との遺伝的類似性
先行研究は、先スペイン期パナマの個体群とチブチャ語族話者、とくにコスタリカおよびパナマのチブチャ語族話者との間の高水準の遺伝的類似性を明らかにしました。本論文はまず、パナマの古代人とコロンビアの古代人が中央アメリカ大陸の現在のチブチャ語族話者と等しく関連しているのかどうか、0未満のf₄統計(ムブティ人、パナマ地峡現代人;パナマ古代人、コロンビア古代人)で調べました。予測されたように、パナマとコロンビアの間よりも、パナマとコスタリカの間の方で、より高水準の経時的なアレル(対立遺伝子)共有が見つかりました。この結果は、パナマの古代人がコロンビアの古代人との比較において現代のチブチャ語族話者で最大化される祖先系統構成要素をずっと高い割合で有している、とのADMIXTUREで観察されたパターンと一致します(図3A)。
次に、パナマの古代人とコロンビアの古代人との間のつながりがコロンビア地峡の現代の人口集団に及んでいるのかどうか、混合していない個体群もしくは非アメリカ大陸先住民祖先系統との近い過去の混合が隠された個体群を用いて、検証されました。f₃形式(ムブティ人、コロンビア古代人;現在のアメリカ大陸先住民)の外群f₃統計は、2000年前頃以後のコロンビアの古代人集団と中央アメリカ大陸のチブチャ語族話者人口集団との高度な類似性を示します(図4A)。一部がチブチャ語族言語も話すコロンビアのアメリカ大陸先住民集団よりも、コロンビア地峡の現在の人口集団で、より高水準の共有された遺伝的浮動が観察されます(図4A)。このパターンは2組のf₄統計で確証されます。0のf₄統計(ムブティ人、現代のアメリカ大陸先住民;コロンビア古代人1、コロンビア古代人2)では、コロンビア人集団のどれかとコロンビア地峡の内部もしくは外部の現代の人口集団との差異的な類似性の証拠はない、と示され、植民地化までの少なくとも2000年前頃以後のアルティプラーノにおける均質な遺伝的特性が確証されます。一方で、0を超えるf₄統計(ムブティ人、コロンビア古代人;現代のアメリカ大陸先住民、中央アメリカ大陸南部の現代人)では、カベカル人(Cabécar)など中央アメリカ大陸のチブチャ語族話者は、本論文のデータセットのどの他の現在の人口集団の場合よりも、2000年前頃以後のコロンビアの古代人と顕著により密接である、と示されます(図4B)。以下は本論文の図4です。
この調査結果は、コロンビア地峡のチブチャ語族関連人口集団をコロンビア北部集団に対して比較した場合でさえ、当てはまります。しかし、コロンビアの現代人集団は、2000年前頃以後のコロンビアの古代人と全員が等しく関連しているわけではありません。具体的には、f₄統計(ムブティ人、コロンビア古代人;コロンビア現代人1、コロンビア現代人2)で示されるように、コロンビア北部および西部の先住民集団は、コロンビアの他地域の先住民集団よりもコロンビアの古代人と高い類似性を有しています。これらコロンビア北部および西部の人口集団の一部はコギ(Kogi)語やアルアコ(Arhuaco)語のようなチブチャ語族言語を話しますが、他の人口集団は話さず、エンベラ(Embera)語やワウナナ(Waunana)語やワユ(Wayuu)語を話しており、2000年前頃以後のコロンビアの古代人との共有された遺伝的類似性は、現代人の遺伝子型データで以前に示されたように、チブチャ語族話者人口集団との地理的な近さに起因するかもしれません[23]。
遺伝的つながりは、金やトゥンガバ(tumbaga、金と銅の合金)の一部の反復模様の分布による事例で証明されているように、コロンビア地峡地域全体の広範な文化的接触に起因するかもしれません。さらに、考古学的証拠から、先コロンブス期には、チブチャ語族話者はコロンビアのより広範な地理的地域を占めており、それにはカウカ渓谷(Cauca Valley)シヌー(Sinú)地域が含まれ、そうした地域ではチョコアン語(Chocoan)の話者との長期の相互作用があった、と示唆されています。
●考察
この研究では、コロンビア地峡地域の南端を表しているアルティプラーノの、ほぼ6000年間の時間横断区にまたがる21個体のゲノム規模データが生成されました。本論文の調査結果は、南アメリカ大陸の移住過程における重要な地域である、この地域の人口史のより深い理解に寄与します。6000年前頃のアルティプラーノの狩猟採集民人口集団には、クローヴィス文化関連のアンジック1号のゲノムおよび古代カリフォルニアのチャネル諸島個体群と関連する遺伝的祖先系統が欠けており、この6000年前頃の狩猟採集民集団の、9000年前頃までに南アメリカ大陸の人々の祖先系統の主要な供給源になった南方アメリカ大陸先住民系統[8]との類似性が示唆されます。しかし、祖先系統の同じ波と関連しているアンデス山脈およびコーノ・スールの古代人のゲノムとは異なり、コロンビアの分析された先土器時代の個体群は、これまでに研究された中央アメリカ大陸および南アメリカ大陸のどの古代もしくは現代の人口集団とも明確な類似性を共有していません。したがって、コロンビア_チェクア_6000年前は、南アメリカ大陸全域で最初の入植期に複数の人口集団を生み出した拡散事象に由来する、以前には報告されていなかった独特な系統としてモデル化できます。
先土器時代とヘレラ期との間のこの文化的移行は、一見すると在来の遺伝的特性の完全な置換と関連しています。これは、形態計測研究と古代mtDNAの時間横断区によって示唆されているように、在来の狩猟採集民がその土地で発展した、とのモデルに異議を唱えます。代わりに、本論文は、6000年前頃以後ではあるものの2000年前頃以前に起きた、アルティプラーノにおける大きな遺伝的置換の証拠を提供します。この置換事象の機序と正確な時間規模は不確かなままなので、この置換事象を3800年前頃のトウモロコシ栽培の出現と直接的に関連づけることはできません。しかし、本論文のデータは、ヘレラ土器複合体と関連する土器の導入は人口拡散によって媒介された、との考古学的仮説を裏づけます。
本論文の結果から、アルティプラーノに侵入してきた遺伝的祖先系統は、中央アメリカ大陸の古代および現在のチブチャ語族話者人口集団と関連している、と示されます。これは、コロンビア地峡への逆移動ではなく、中央アメリカ大陸南部から南アメリカ大陸へのチブチャ語族話者関連の移住によって最も節約的に説明できます。別の研究では、中央アメリカ大陸南部からベリーズのマヤ地域への5600年前頃までとなる、チブチャ語族関連祖先系統の以前には知られていなかった南方から北方への拡大の証拠が見つかりました[49]。したがって、チブチャ語族と関連する中央アメリカ大陸人口集団を、北アメリカ大陸と南アメリカ大陸の祖先系統間の混合に由来するとモデル化するのではなく[23]、これらの結果は、中央アメリカ大陸南部にチブチャ語族関連祖先系統の起源があり、およびその後のメソアメリカと南アメリカ大陸の両方への2方向の遺伝子流動が続いたことと一致します。中央アメリカ大陸に元々の「チブチャ語族の故地」があった、とのこのモデルは、チブチャ語族話者の現在の人口集団に関するmtDNA研究だけではなく、コロンビア地峡地域がこのチブチャ語族内で最高の多様性を示す、と示唆する言語学的観察によっても裏づけられます。
考古学的観点からは、チブチャ語族関連祖先系統は、ヘレラ土器と関連する2000年前頃の個体群で初めて特定されます。さらに、以前に配列決定された2400年前頃のベネズエラの土器関連個体群も、チブチャ語族話者の中央アメリカ大陸人口集団との高い類似性を示します[44]。同様の祖先系統パターンと時間的枠組みにも関わらず、この2人口集団は単一の姉妹群を形成しないようです。これは、複数の異なるチブチャ語族言語の南アメリカ大陸への拡大を示唆する証拠と一致するかもしれませんが、この問題のさらなる解明には追加の研究が必要でしょう。
この地域の遺伝的景観を完全に作り変えたチブチャ語族関連祖先系統の到来後に、1500年以上にわたる(少なくとも2000~500年前頃)局所的人口集団の遺伝的特性における長期の遺伝的連続性の証拠が見つかります。遺伝的祖先系統における安定性には、ヘレラ期末とムイスカ期の開始が含まれます。これが示す想定では、チブチャ語族系統の言語を話す人口集団がムイスカ文化と通常は関連づけられる特徴の出現の前にアルティプラーノに定住しており、それが示すのは、この文化的移行が異なる遺伝的祖先系統組成を有する地域からの大規模な移住なしに起きたことです。さらに、そうした遺伝的連続性はムイスカ期内の異なる文化段階に及んでおり、スペインによる植民地化まで持続しました。植民地期の言語学的記録から、ムイスカ文化の人々は今では消滅したチブチャ語を話していた、と確証されました。本論文の調査結果は、中央アメリカ大陸のチブチャ語族話者との遺伝的つながりを確証するだけではなく、おそらくは記録されているムイスカ語を生み出したマグダラ語派(Magdalenic)の基底部に位置するチブチャ語族の祖語が、すでに先ムイスカ文化のヘレラ期にアルティプラーノで話されていたことも示唆します。
本論文のデータセットにおける先住民集団の代表性は確かに包括的ではありませんが、2000年前頃以後のコロンビアの古代人と現在の先住民集団との遺伝的類似性で観察されたパターンは、チブチャ語族話「群島」とも呼ばれる、スペイン植民地期におけるコロンビア地峡全域のチブチャ語族話者の人口集団の不均等な分布に関する問題を提起します。
一つの可能な説明は、この分布が、チブチャ語族の最初の分岐パターンによって示唆されるように、単一の拡大の波ではなく、中央アメリカ大陸から南アメリカ大陸北部のさまざまに場所への別々の拡散から所ヴした、というものです。しかし、最初の拡大はより広範で、その後でチブチャ語族話者の移住および混合事象によって断片化した可能性もあります。コロンビア北部のチブチャ語族に分類される人口集団は、中央アメリカ大陸南部の人々とよりも、2000年前頃以後のコロンビアの古代人の方と遺伝的類似性が顕著に減少していた、との観察は、南アメリカ大陸北部の遺伝的多様性の形成における人口集混合の役割を裏づけます。
本論文は、コロンビア地峡地域の複雑な人口史の理解を大きく深めますが、3点の主要な限界を強調します。第一に、本論文は古代アメリカ大陸先住民集団のゲノム規模捕獲データを報告しますが、124万SNP捕獲パネルにおける差異の大半は、アメリカ大陸先住民集団で固定されています。これは本論文の分析の解像度を制約しており、将来の試みでは、全ゲノム配列決定および/もしくはアメリカ大陸先住民固有のSNPパネルの標的濃縮を行ない、統計的検出力と分析の複雑さを高めるべきです。第二に、アルティプラーノにおけるより密なゲノム時間横断区は、チブチャ語族関連祖先系統の到来の時期を絞り込むことができ、まだ特徴づけられていない祖先系統供給源との混合を特定できるかもしれません。第三に、本論文は地域的に焦点を当てているので、報告された人口変容が、チブチャ語族の記録された証拠がある地域とない地域の両方について、アルティプラーノ以外の他の地域にも影響を及ぼしたのかどうか、評価することが重要です。コロンビア西部やベネズエラ西部やエクアドルなど、古代ゲノミクスでまだ分析されていない北アンデス山脈沿いの近隣地域からの古代ゲノムデータが、南アメリカ大陸へのヒトの移動の時期と祖先系統供給源をより深く明らかにするのに重要でしょう。
参考文献:
Krettek KL. et al.(2025): A 6000-year-long genomic transect from the Bogotá Altiplano reveals multiple genetic shifts in the demographic history of Colombia. Science Advances, 11, 22, eads6284.
https://doi.org/10.1126/sciadv.ads6284
[1]Raghavan M. et al.(2015): Genomic evidence for the Pleistocene and recent population history of Native Americans. Science, 349, 6250, aab3884.
https://doi.org/10.1126/science.aab3884
関連記事
[2]Moreno-Mayar JV. et al.(2018): Terminal Pleistocene Alaskan genome reveals first founding population of Native Americans. Nature, 553, 7687, 203–207.
https://doi.org/10.1038/nature25173
関連記事
[3]Sikora M. et al.(2019): The population history of northeastern Siberia since the Pleistocene. Nature, 570, 7760, 182–188.
https://doi.org/10.1038/s41586-019-1279-z
関連記事
[4]Yu H. et al.(2020): Paleolithic to Bronze Age Siberians Reveal Connections with First Americans and across Eurasia. Cell, 181, 6, 1232–1245.E20.
https://doi.org/10.1016/j.cell.2020.04.037
関連記事
[5]Moreno-Mayar JV. et al.(2018): Early human dispersals within the Americas. Science, 362, 6419, eaav2621.
https://doi.org/10.1126/science.aav2621
関連記事
[6]Scheib CL. et al.(2018): Ancient human parallel lineages within North America contributed to a coastal expansion. Science, 360, 6392, 1024-1027.
https://doi.org/10.1126/science.aar6851
関連記事
[7]Rasmussen M. et al.(2014): The genome of a Late Pleistocene human from a Clovis burial site in western Montana. Nature, 506, 7487, 225–229.
https://doi.org/10.1038/nature13025
関連記事
[8]Posth C. et al.(2018): Reconstructing the Deep Population History of Central and South America. Cell, 175, 5, 1185–1197.E22.
https://doi.org/10.1016/j.cell.2018.10.027
関連記事>
[9]Nakatsuka N. et al.(2023): Genetic continuity and change among the Indigenous peoples of California. Nature, 624, 7990, 122–129.
https://doi.org/10.1038/s41586-023-06771-5
関連記事>
[10]Ferraz T. et al.(2023): Genomic history of coastal societies from eastern South America. Nature Ecology & Evolution, 7, 8, 1315–1330.
https://doi.org/10.1038/s41559-023-02114-9
関連記事>
[11]Nakatsuka N. et al.(2020): A Paleogenomic Reconstruction of the Deep Population History of the Andes. Cell, 181, 5, 1131–1145.E21.
https://doi.org/10.1016/j.cell.2020.04.015
関連記事>
[23]Reich D. et al.(2012): Reconstructing Native American population history. Nature, 488, 7411, 370–374.
https://doi.org/10.1038/nature11258
関連記事>
[37]Mallick S. et al.(2016): The Simons Genome Diversity Project: 300 genomes from 142 diverse populations. Nature, 538, 7624, 201–206.
https://doi.org/10.1038/nature18964
関連記事>
[41]Ringbauer H, Novembre J, and Steinrücken M.(2021): Parental relatedness through time revealed by runs of homozygosity in ancient DNA. Nature Communications, 12, 5425.
https://doi.org/10.1038/s41467-021-25289-w
関連記事>
[44]Fernandes DM. et al.(2021): A genetic history of the pre-contact Caribbean. Nature, 590, 7844, 103–110.
https://doi.org/10.1038/s41586-020-03053-2
関連記事>
[45]Nägele K. et al.(2020): Genomic insights into the early peopling of the Caribbean. Science, 369, 6502, 456–460.
https://doi.org/10.1126/science.aba8697
関連記事
[49]Kennett DJ. et al.(2022): South-to-north migration preceded the advent of intensive farming in the Maya region. Nature Communications, 13, 1530.
https://doi.org/10.1038/s41467-022-29158-y
関連記事

この記事へのコメント